Влияние кратковременного теплового и холодового шока на эмбриональное развитие и выживаемость икры Nothobranchius guentheri
Влияние кратковременного теплового и холодового шока на эмбриональное развитие и выживаемость икры Nothobranchius guentheri

Аннотация
Сезонные карпозубообразные рыбы, обитающие в пересыхающих водоемах, представляют собой уникальную модель для изучения адаптаций к экстремальным условиям среды. В данной работе исследовано влияние кратковременного (2 часа) шокового воздействия субоптимальных температур (7, 16 и 34 °C) на эмбрионы Nothobranchius guentheri, находящиеся на стадии первой эмбриональной диапаузы (DP I). Контрольной группой служила икра, инкубируемая при оптимальной температуре 24 °C. Установлено, что кратковременный тепловой шок (34 °C) не оказывает существенного влияния на выживаемость и скорость развития эмбрионов, что подтверждает высокую эволюционную адаптацию вида к перегреву нерестового субстрата в период засухи. Напротив, холодовой стресс приводит к значительным нарушениям.
Воздействие температуры 7 и 16 °C снижает итоговую выживаемость икры до 49,70 и 56,25% (против 81,25% в контроле). Наиболее критичным оказалось влияние температуры 7 °C, при которой наблюдалась не только ранняя гибель эмбрионов, но и выраженное удлинение I диапаузы. Это привело к смещению сроков выклева первых личинок на 26 суток после воздействия (DPE) по сравнению с 14 DPE в остальных группах. Примечательно, что ни в одной из экспериментальных групп не было зафиксировано морфологических аномалий развития. Гибель происходила преимущественно на ранних этапах инкубации (2-8 DPE), тогда как выжившие после холодового шока особи демонстрировали высокую онтогенетическую пластичность и успешно завершали органогенез. Результаты подчеркивают высокую резистентность эмбрионов сезонных рыб к тепловому стрессу и их уязвимость к резкому переохлаждению, что коррелирует со спецификой их естественных биотопов.
1. Введение
Nothobranchius guentheri является эндемиком острова Занзибар, относящимся к группе сезонных карпозубых семейства Nothobranchiidae
. Как и другие представители семейства, данный вид населяет пересыхающие водоемы юга Африки. Его жизненный цикл характеризуется увеличенной продолжительностью эмбриогенеза, совпадающей с периодом засухи , . Выживание в подобных нестабильных биотопах обеспечивается эмбриональной диапаузой — обратимой остановкой развития. Согласно классической периодизации , в эмбриогенезе сезонных карпозубообразных выделяют три стадии диапаузы: диапауза I наступает по завершении гаструляции (на этапе дисперсии и реагрегации бластомеров), диапауза II в период сомитогенеза, а диапауза III на стадии сформированного эмбриона непосредственно перед выклевом. Перечисленные особенности эмбрионального развития, наряду с коротким жизненным циклом, позволяют использовать африканские сезонных карпозубообразных в качестве модельных объектов для изучения механизмов адаптации к экстремальным условиям среды у рыб , .В лабораторных условиях продолжительность эмбрионального развития N. guentheri составляет 3–4 недели
, . Выклев основной массы эмбрионов, как правило, происходит на 3-й неделе инкубации; при этом развитие протекает относительно синхронно в пределах одной кладки, минуя стадии диапаузы I и II и реализуя прямой путь развития (англ. escape trajectory). По срокам эмбриогенеза данный вид значительно более по сравнению с N. rachovii (4-7 месяцев) и N. furzeri, N. kadleci (2–3 месяца) , , но сопоставим с N. korthausae (1–2 месяца) . Относительно короткий период инкубации в сочетании с прозрачной яйцевой оболочкой на всех этапах эмбриогенеза делает N. guentheri удобным видом для изучения влияния экзогенных факторов на эмбриональное развитие .Температура выступает ключевым экзогенным фактором, определяющим эмбриональное развитие рыб. Отклонение температуры инкубации от оптимума закономерно изменяет скорость эмбриогенеза
, , а значительный выход за пределы оптимума приводит к повышению смертности эмбрионов и частоты морфологических аномалий . Влияние различных температурных режимов на сезонных карпозубых было описано в ряде работ , , . При этом в естественных биотопах развитие данной группы протекает на фоне постоянных температурных флуктуаций в диапазоне от 15 до 35 °C . Работы, посвященные шоковому воздействию субоптимальных температур на эмбрионы сезонных карпозубых, малочисленны , , . В существующих исследованиях акцент сделан преимущественно на механизмах выхода из диапаузы, тогда как влияние температурного стресса на общую динамику эмбриогенеза остается практически неизученным.Таким образом, целью настоящего исследования является оценить влияния краткосрочного шокового температурного воздействия на выживаемость и скорость эмбрионального развития Nothobranchius guentheri, как представителя сезонных карпозубообразных.
2. Методы и принципы исследования
Изолят Nothobranchius guentheri Zanzibar TAN 14-02 был получен из коллекции Института молекулярной биологии им. В.А. Энгельгардта РАН. Содержание и уход за рыбами осуществлялся согласно рекомендациям Polačik et al.
. Для получения икры рыб (возрастом 3-5 мес) разделили по половому признаку (1 самец на 2 самки) и содержали в аквариумах объемом 30 л (45 × 45 × 15 см, Ш × Д × В) с постоянной аэрацией при температуре 22,0 ± 1,5 °C и pH 7,2–7,6. Всего, в рамках настоящего исследования, было задействовано 12 нерестовых групп производителей (36 особей). Вода в этих аквариумах заменялась частично (один раз в 2 дня) и полностью (один раз в 7 дней). В качестве нерестового субстрата использовал кокосовый торф. Рыб кормили живым кормом (Daphnia magna, личинки семейства Chironomidae, Artemia salina) два раза в день (12:00 и 18:00 ч).В качестве температурного воздействия использовали три субоптимальных температуры (7, 16 и 34 °C) и один оптимальный (24 °C), служивший контролем. Длительность температурного шока составляла 2 часа; данный интервал был выбран на основе предварительных экспериментов, в которых более продолжительное воздействие приводило к гибели большей части икры. Выбор температурных режимов основывался на данных Markofsky & Matias
, .Икру отбирали из влажного торфа через 7 суток после акклиматизации и начала активного нерестового поведения. Для экспериментов использовались только икринки на морфологической стадии, соответствующей первой диапаузе. Отобранный материал помещали в чашки Петри (диаметром 90 мм, объем раствора 100 мл) с раствором Ямамото (130 мМ NaCl, 2,7 мМ KCl, 2,0 мМ CaCl2, 0,2 мМ NaHCO3) при плотности 16 икринок на чашку.
Эксперимент выполняли в трехкратной повторности (n = 16 × 3). Для инкубации при температурах 16 и 34 °C чашки Петри помещали в термостат (Binder 115, Binder GmbH, Германия), при 7 °C — в холодильную камеру (LKexv 1800 Mediline, Liebherr, Австрия). После 2-часовой экспозиции чашки переносили в термостат (Binder 115) с оптимальной температурой (24 °C). Контрольную группу непрерывно инкубировали при оптимальной температуре. Наблюдение за развитием икры (фиксация гибели и условной стадии развития) осуществляли каждые двое суток в течение 32 дней. Фотофиксацию проводили с помощью светового микроскопа Olympus BX53 (Olympus Corp., Япония), оснащенного цифровой камерой ToupCam 16.0 MP. Для получения изображений применяли программное обеспечение ToupView (ToupTek Photonics, Китай). Последующую обработку полученных микрофотографий (коррекцию яркости, контрастности и экспозиции) выполняли в программе Adobe Photoshop 2024 (Adobe Systems, США).
Для количественной оценки влияния температурного шока на эмбриогенез N. guentheri процесс развития был разделен на несколько стадий со следующими морфологическими критериями:
– диапауза I (DP I) — равномерное покрытие желтка клетками (глубокими клетками и клетками обволакивающего слоя) (рис. 1, а);
– органогенез I (Org I) — формирование оси тела (4–16 сомитов), визуализация мозговых плакод и глазных пузырей (рис. 1, б);
– органогенез II (Org II) — рост тела эмбриона (24–30 сомитов), частичная пигментация сетчатки и тела, дифференцировка трех отделов головного мозга и слуховых капсул, начало кровообращения (рис. 1, в);
– органогенез III (Org III) — рост тела эмбриона при уменьшении желточного мешка, интенсивное кровообращение, формирование плавниковой складки, достижение кончиком хвоста границы головного отдела (рис. 1, г);
– перед выклевом (PreH) — завершение органогенеза, выраженная пигментация сетчатки и тела, значительное уменьшение желточного мешка, кончик хвоста достигает среднего отдела мозга, аналогичная диапаузе III (рис. 1, д, е);
– выклев — личинки непосредственно после выхода из яйцевых оболочек. Следует отметить, что описанные стадии не являются универсальными, а представляют собой концептуальную основу для данных настоящего исследования. Классическая стадийность развития сезонных карпозубообразных дана в работах Wourms
и Inglima et al. .Обработка данных и визуализация результатов производилась с использованием GraphPad Prism v 9.0 (GraphPad, San Diego, CA, USA) и в среде RStudio v 3.6.0
с использованием языка R v 4.4.3 . Значение p <0.05 было принято, как статистически достоверное. Данные сравнения анализируемых переменных представлены в виде Средних ± стандартное отклонение (M ± SD), если не указано иное. Визуализация динамики эмбрионального развития в виде графиков с областями выполнялась с использованием пакета ggplot2 v. 4.0.0 .Для оценки влияния кратковременного температурного воздействия на кумулятивную выживаемость эмбрионов применялся метод Каплана-Майера с последующим сравнением кривых выживаемости с помощью теста Мантеля-Кокса. Сравнение доли выживших эмбрионов и долей эмбрионов на конкретных установленных стадиях развития в определенных временных точках (сутки после воздействия, DPE) проводилось с использованием критерия Краскела-Уоллиса с пост-хок тестом Данна, исходя из распределения данных и однородности вариаций (тесты Шапиро-Уилка и Левена). Для сравнения профилей развития доля эмбрионов на конкретных стадиях рассчитывалась исключительно от числа выживших особей на момент наблюдения, принятого за 100%. Это позволило убрать влияние разной смертности в экспериментальных группах на оценку скорости эмбриогенеза.
Для оценки сдвигов в общем профиле развития (сравнение распределения по всем выделенным стадиям развития) в конкретные временные точки использовался критерий Хи-квадрат. Для данного анализа использовались абсолютные значения количества икринок, просуммированные по трем повторностям каждой группы. При этом на ряде временных точек из сравнения исключались стадии развития без эмбрионов.
Для оценки влияния температурного шока на динамику развития икры на протяжении всего эксперимента применялась обобщенная линейная смешанная модель (GLMM) с биномиальным распределением из пакета glmmTMB v. 1.1.14 . В качестве фиксированных факторов в модель были включены «Температура» (7°C, 16°C, 24°C и 34°C), «Время» (0-32 DPE) и их взаимодействие, а в качестве случайного эффекта — биологическая повторность. Оценка значимости главных эффектов и их взаимодействия проводилась с использованием дисперсионного анализа (ANOVA) с поправкой Тьюки из пакета car v. 3.1.5 .
3. Основные результаты
Кратковременное воздействие низких температур оказало статистически значимое влияние на выживаемость икры N. guentheri. Необходимо отметить, что при исследовании икры всех экспериментальных групп морфологических аномалий развития у эмбрионов и личинок обнаружено не было.
Во всех экспериментальных группах в период с 2 по 8 DPE отмечалась единичная гибель эмбрионов (рис. 1, ж). Сравнение кривых выживаемости Каплана-Мейера выявило статистически значимые различия между выборками (χ2(3) = 13,91, p = 0,003). В частности, при кратковременном действии температуры 7 °C уже на 6-е сутки зафиксировано значимое снижение выживаемости до 56,3% по сравнению с контролем (H(3) = 8,805, p = 0,004; padj = 0,049) (рис. 1, з). В этой группе наблюдался повышенный уровень смертности на протяжении всего эксперимента, которые достоверно отличался от контроля на 32 DPE (H(3) = 9,278, p = 0,002; padj = 0,008) (рис. 1, и). Выживаемость икринок после воздействия температуры 16 °C к концу опыта также оказалась ниже контрольного показателя — 56,25% против 81,25% (padj = 0,021). Между остальными исследованными группами статистически значимых различий не обнаружено.
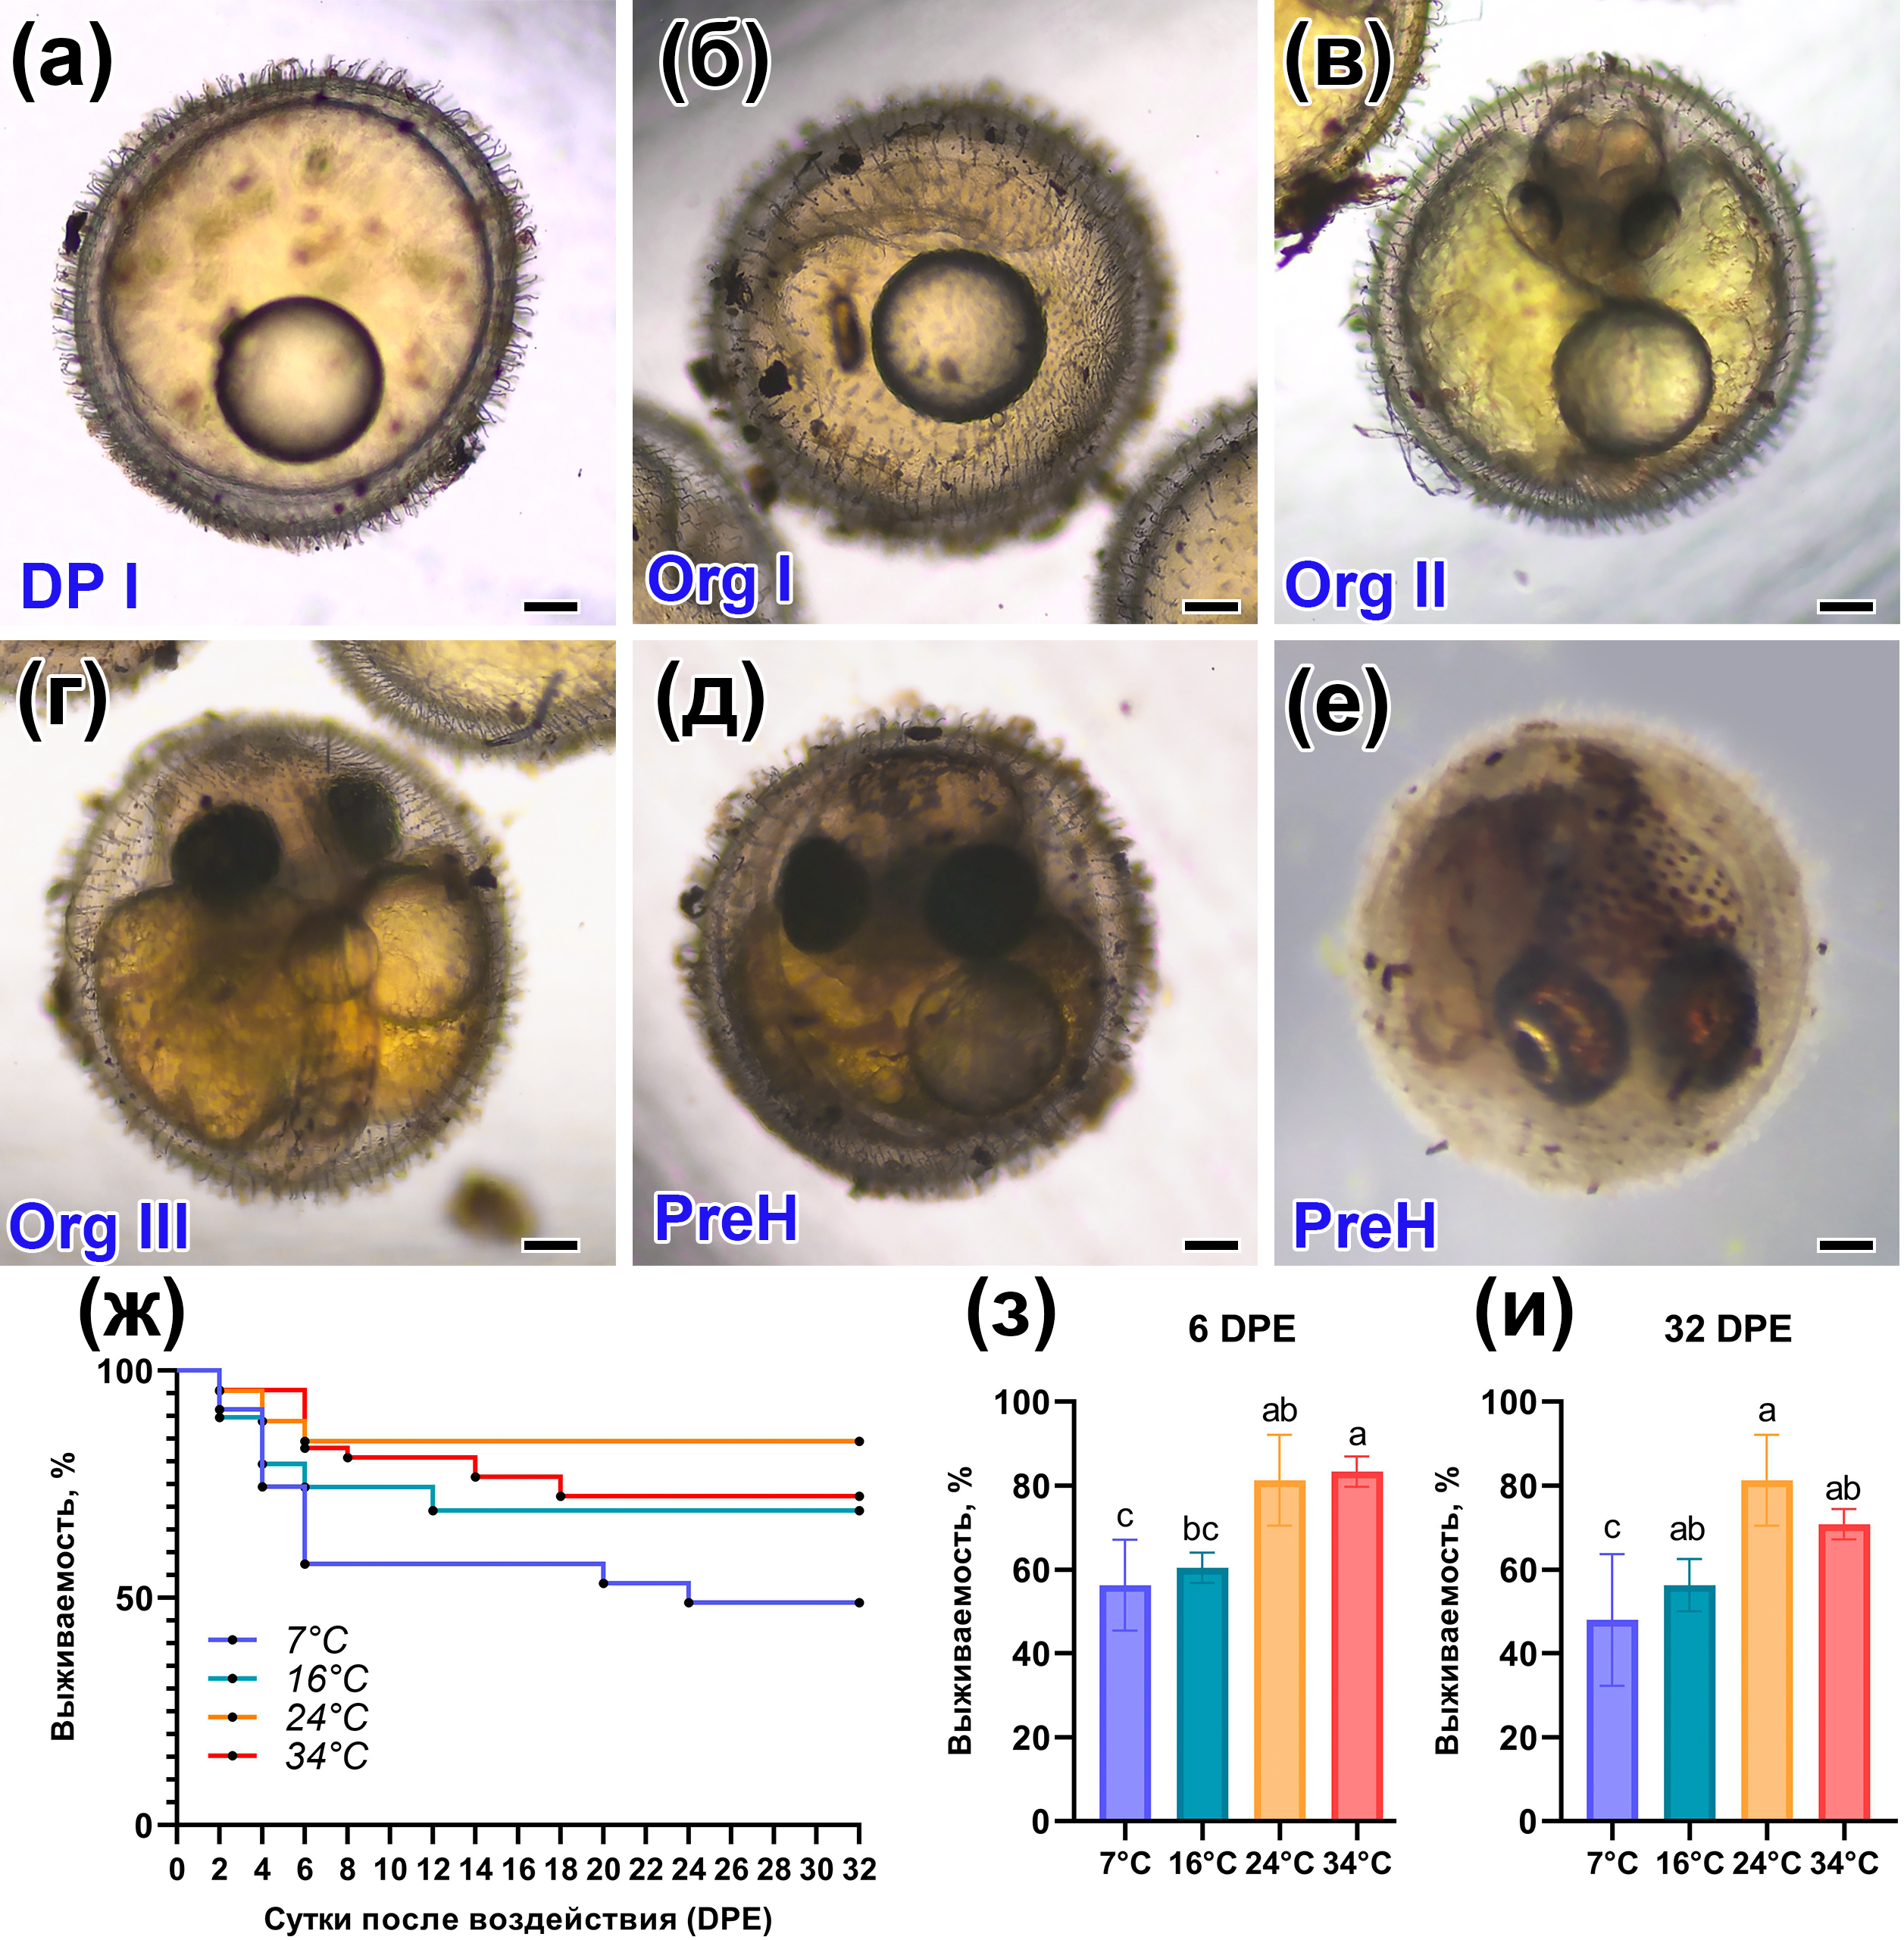
Ключевые стадии развития (а-е) и показатели выживаемости (ж-и) икринок N. guentheri после краткосрочного воздействия различных температур
здесь и далее надстрочные буквы (a, b, c) указывают на статистическую значимость из критерия Краскела-Уоллиса с пост-хок тестом Данна
Применение GLMM для оценки влияния температурного шока на динамику развития икры на протяжении эксперимента подтвердило статистически значимое влияние температуры на траектории стадий DPI (χ2(3) = 28,589, p < 0,001), PreH (χ2(3) = 15,724, p = 0,001) и выклева (χ2(3) = 11,884, p = 0,008). Апостериорный анализ показал, что кратковременное понижение температуры замедляет выход из DP I, переход на стадию PreH и выклев. Так, начиная с 21 DPE, доля эмбрионов на стадии PreH при действии температуры 7 °C была значимо ниже, чем в контрольной группе (z = -4,640, padj < 0,001) и температуре 35 °C (z = -4,709, padj < 0,001) (рис. 2, а, г, д). Аналогичная задержка развития была выявлена и для стадии выклева: начиная с 23 DPE икринки при шоковом воздействии температуры 7 °C значимо уступали как контролю (z = -4,912, padj < 0,001), так и эмрионам, подвергшимся действию температуры 35 °C (z = -4,927, padj < 0,001). При этом динамика доли эмбрионов на стадиях OrgI, OrgII и OrgIII не показала статистически значимых различий между температурными группами (во всех случаях χ2(3) < 1,00, p > 0,05).
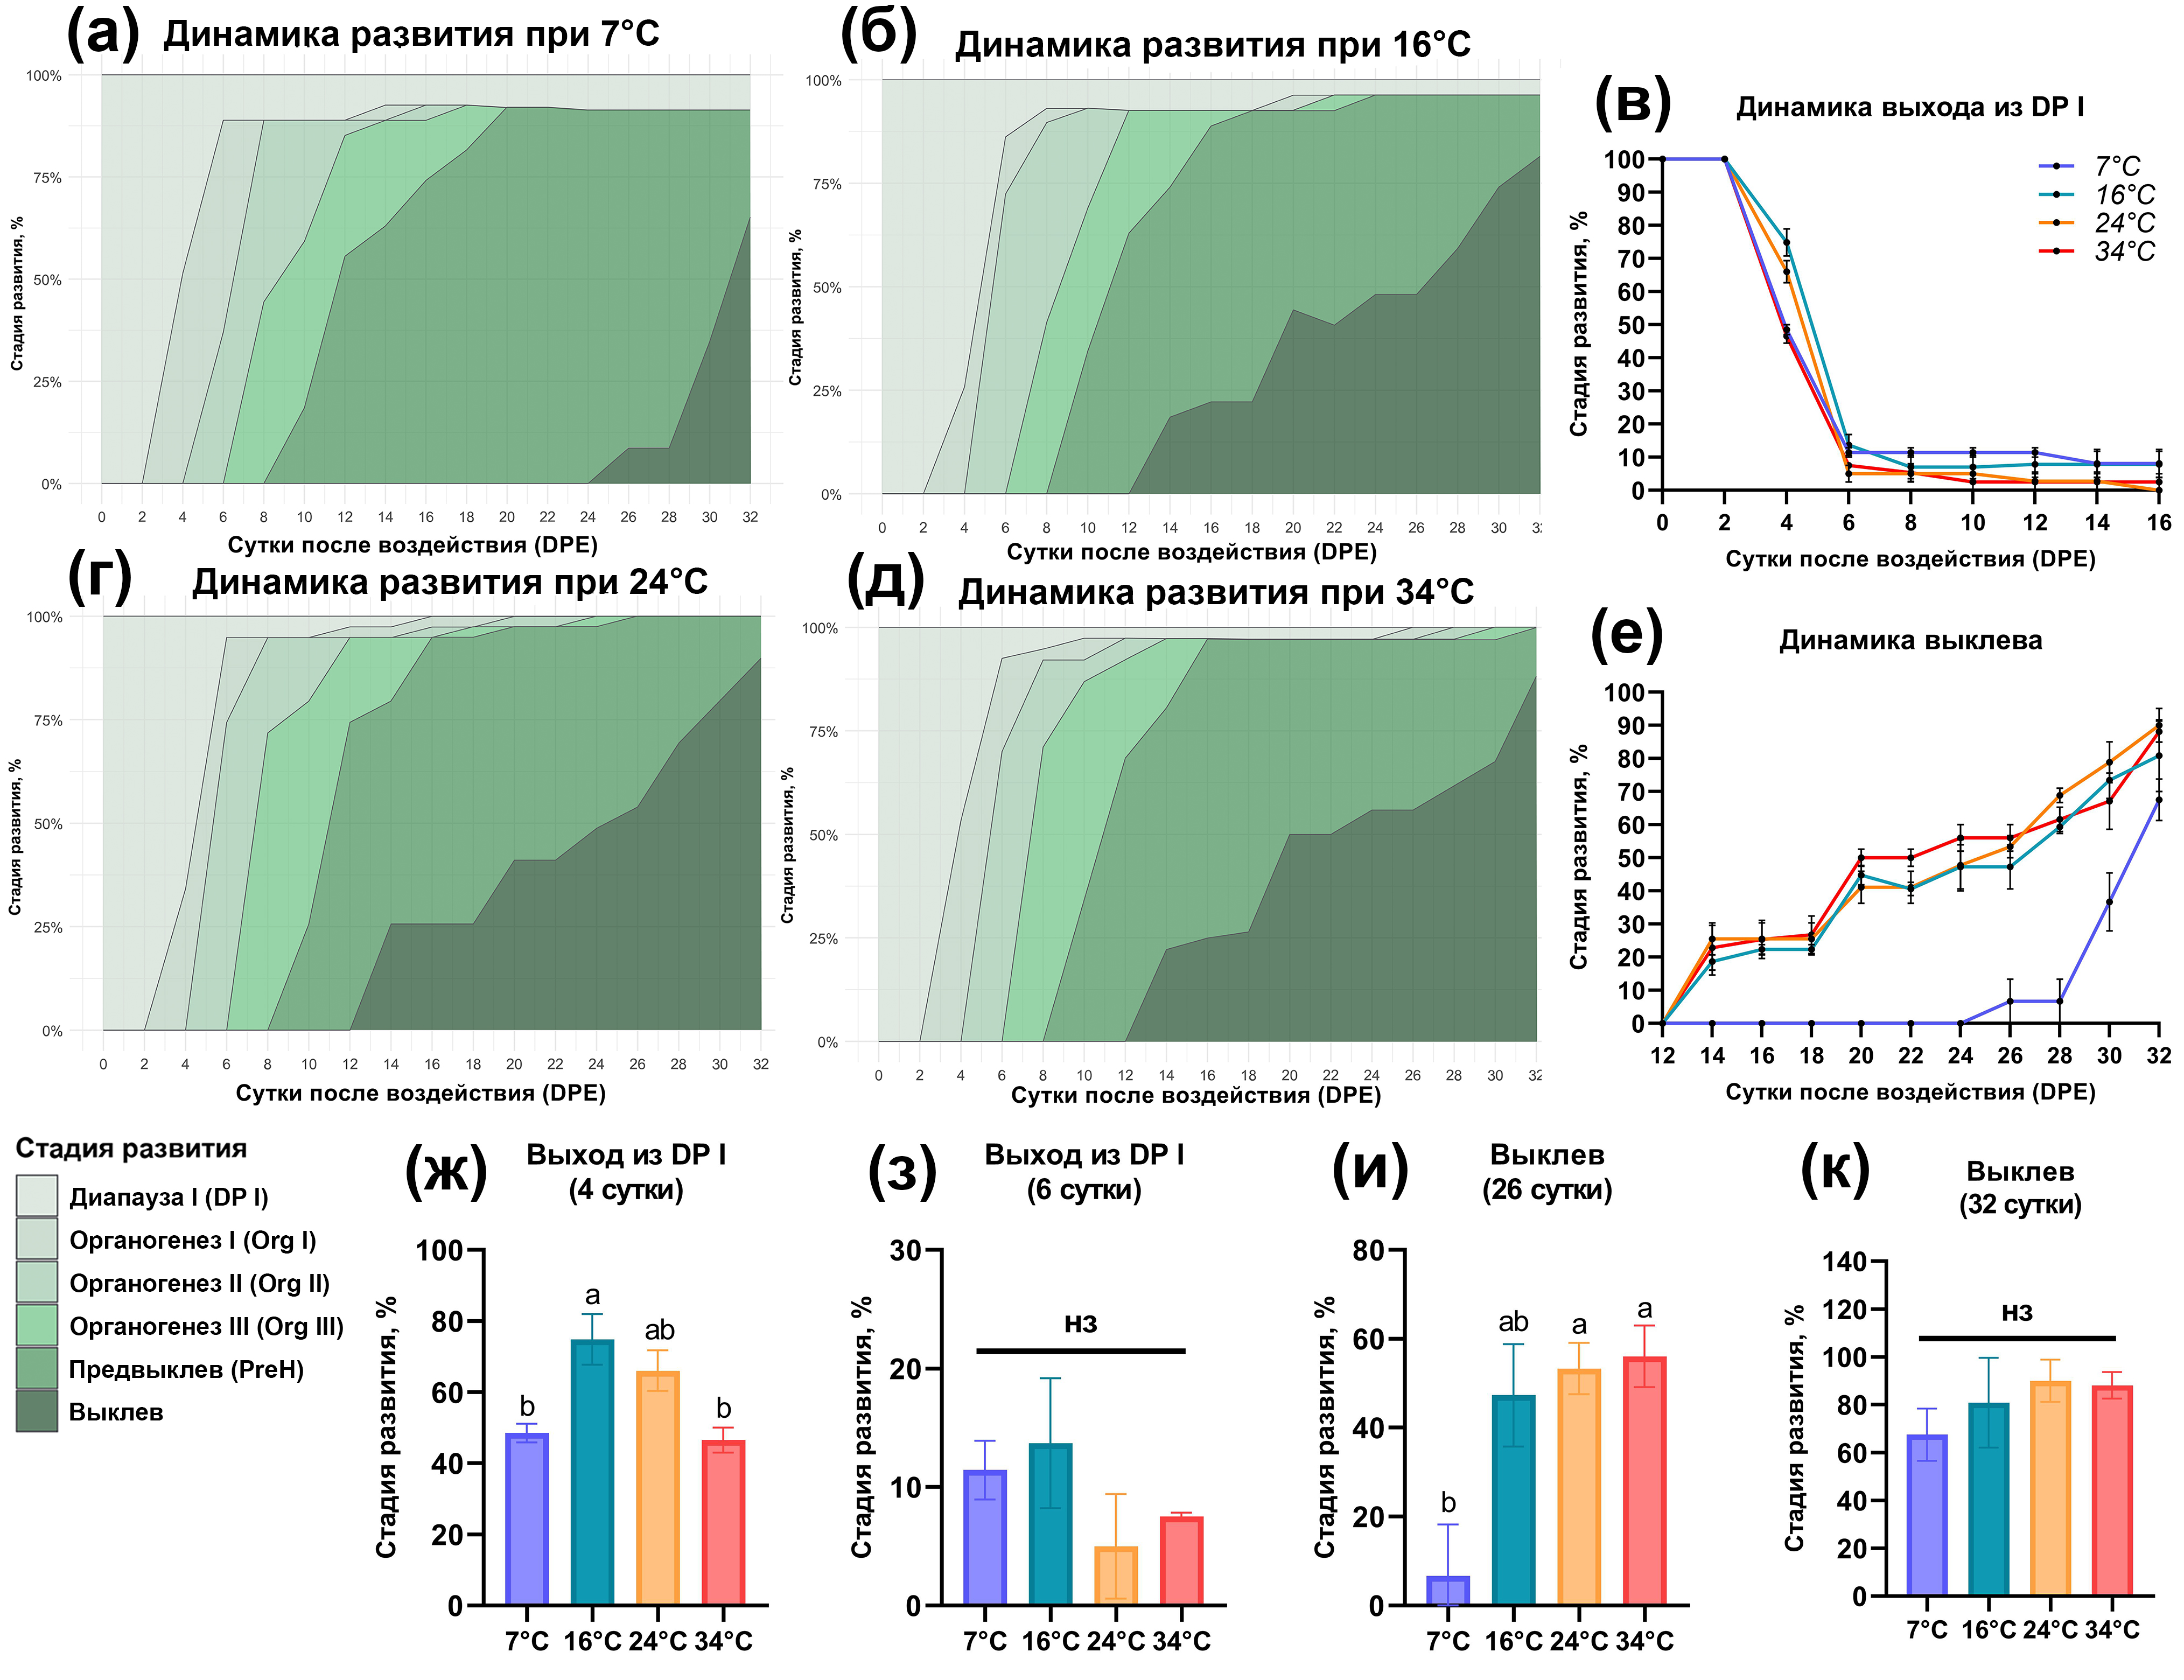
Динамика развития (изменение ключевых стадий развития) икринок N. guentheri после краткосрочного воздействия различных температур
Анализ динамики выклева показал, что во всех группах, за исключением икринок после кратковрменной дейстувия температуры 7 °C, выклев первых личинок происходил на 14 DPE (рис. 2, е). Послей воздействия температуры 7 °C выклев наблюдался только на 26-е сутки (рис. 2, и), что статистически значимо отличалось от показателей при температурах 24 °C и 34 °C (H(3) = 7,32, p = 0,036; padj = 0,034 и 0,011 соответственно). Несмотря на выраженную тенденцию к снижению доли выклева при 7 °C (65,2% против 89,7% в контроле), статистически значимых различий выявлено не было (H(3) = 5,50, p = 0,134), что может быть связано с высокой дисперсией данных при данном объеме выборки.
Таким образом, температурный шок (особенно 7 °C и 16 °C) значимо снижает общий репродуктивный успех за счет высокой смертности и задержки эмбриогенеза, однако эмбрионы, пережившие шок, сохраняют способность к успешному завершению развития и выклеву.
4. Обсуждение
Результаты проведенного исследования показывают, что наиболее выраженное влияние на эмбриональное развитие N. guentheri оказывает холодовой шок, в частности кратковременное воздействие температуры 7 °C. Это согласуется с данными Markofsky & Matias
, , показавшими, что острая экспозиция при низких температурах (3,4 и 9,0 °C), а также субоптимальная температура инкубации (19,4 °C) приводят к существенному замедлению эмбриогенеза N. guentheri, снижению выживаемости и увеличению доли аномалий развития. Инкубация икры указанного вида, под данным другого исследования Nguyen & Persoone , при субоптимальных температурах (15–20 °C) также приводила к замедлению развития и снижению выклева. Дополнительно, в работе по определению кривых температурной эффективности для ранних стадий развития несезонного вида — Fundulus heteroclitus было установлено, что нижний температурный предел предположительно лежит в пределах 15 °C , что также сходится с результатами настоящего исследования.В то же время кратковременное действие повышенной субоптимальной температуры (34 °C) не оказало статистически значимого влияния на скорость развития и выживаемость эмбрионов. Как и у других рыб, повышение температуры инкубации у карпозубообразных сокращает сроки эмбриогенеза, что ранее отмечено для Aphanius dispar
и F. heteroclitus . У многих сезонных карпозубых этот фактор позволяет эмбрионам миновать стадию диапаузы, реализуя прямой путь развития , , . В свою очередь данные о краткосрочном воздействии температур на эмбриогенез карпозубообразных немногочисленны. Например, у F. heteroclitus инкубация при изменяющейся температуре — 26 ± 7 °C (с пиками до 33 °C) снижала выживаемость икры . Для N. guentheri установлено, что тепловой шок при 40,0 °C замедляет развитие из-за увеличения длительности диапаузы II, тогда как кратковременная экспозиция при 32,7 °C не изменяет траекторию развития и не вызывает гибели эмбрионов .Приведенные выше экспериментальные данные и результаты настоящего исследований можно объяснить эволюционной адаптацией сезонных карпозубообразных, в частности представителей рода Nothobranchius, к высоким температурам. Эмбриогенез этих видов протекает в субстрате пересыхающих водоемов в условиях выраженных температурных колебаний, гипоксии и дефицита влаги
, . Как было показано в работе Polačik et al. для естественных популяций Nothobranchius spp., в период засухи температура нерестового субстрата на поверхности варьирует от 13 до 47 °C. Сходные температурные колебания (27,1–35,7 °C) были также выявлены в местах обитания южноамериканского сезонного вида Austrofundulus limnaeus . Следовательно, эмбрионы сезонных карпозубообразных обладают высокой толерантностью к тепловому стрессу, в то время как механизмы устойчивости к резкому переохлаждению у них развиты слабо, что определяет высокую смертность икры при шоковом воздействии 7 °C.Особенность полученных результатов являлась гибель эмбрионов в опытных группах преимущественно на начало опыта (2–8 DPE). Ранние стадии эмбриогенеза рыб (периоды дробления и сомитогенеза) обладают повышенной чувствительностью к стрессовым воздействиям, в том числе термическим. Это обусловлено тем, что на данных стадиях развития происходят важные морфогенетические процессы, при этом формирование эффективных гомеостатических механизмов еще не завершено
, , , . Несмотря на это, большинство эмбрионов, перенесших холодовой шок, в конце опыта успешно достигали стадии выклева. Дальнейшее развитие после температурного стресса может объясняться высокой степенью онтогенетической пластичности у эмбрионов карпозубообразных — группы, характеризующейся выраженной толерантностью к абиотическим факторам , . В частности, эмбрионы несезонного солоноватоводного вида Fundulus grandis способны развиваться при солености до 60 г/л , а для икры Austrofundulus limnaeus показана крайне высокая устойчивость к гипоксии среди рыб . Вероятно, при успешном преодолении эмбрионом острого стрессового воздействия активируются компенсаторные механизмы, позволяющие завершить органогенез.В рамках текущего исследования не оценивалось постэмбриональное развитие особей, перенесших температурный шок. Известно, что подобные воздействия могут приводить к отсроченным физиологическим изменениям на последующих стадиях. Например, у взрослых особей F. heteroclitus, при инкубации икры за пределами температурного оптимума, отмечалось снижение толерантности к колебаниям температуры и гипоксии
, а у N. furzeri — увеличение скорости роста и сокращение продолжительности жизни . Сходные физиологические перестройки различной направленности также были зарегистрированы и у других видов рыб , . Следовательно, оценка долгосрочных последствий острого температурного стресса у представителей Nothobranchius spp. требует проведения дополнительных исследований.Наряду с вышеизложенным, воздействие кратковременного холодового шока (7 °C) индуцировало выраженную задержку выхода эмбрионов N. guentheri из первой диапаузы (DP I). Это приводило к увеличению длительности последующего эмбриогенеза и смещению сроков выклева, который наступал лишь на 26-е сутки. Известно, что у сезонных карпозубообразных температурный фактор служит одним из ключевых сигналов к прерыванию диапаузы и возобновления развития. В частности, кратковременная (2 суток) экспозиция икры A. Limnaeus
, и инкубация икры N. korthausae при 30 °C приводили к полному пропуску II диапаузы. В свою очередь, инкубация при 18 °C вызывала у F. heteroclitus диапаузо-подобную задержку выклева . Согласно Podrabsky et al. , ускорение эмбриогенеза в ответ на повышение температуры обусловлено тем, что в естественной среде обитания данный фактор ассоциирован с началом сезона дождей в тропических регионах, выступая экологическим стимулом к быстрому развитию. Исходя из этого, резкое кратковременное снижение температуры, до экстремальных значений, вероятно, вызывает метаболические нарушения, которые фенотипически проявляется как пролонгация фазы DP I.Несмотря на значимость полученных результатов, настоящее исследование имеет ряд методологических ограничений.
Во-первых, воздействие температурного шока оценивалось исключительно на эмбрионах, находящихся на стадии первой диапаузы (DP I). Поскольку чувствительность к стрессовым факторам может изменяться в процессе онтогенеза, реакция эмбрионов на температурный стресс на более поздних этапах может иметь иную динамику , .
Во-вторых, дизайн эксперимента охватывал только эмбриональный период, оставляя неизученным вопрос выживаемости и качества личинок после выклева. Дополнительно, небольшой объем выборки на фоне высокой дисперсии траекторий развития и выживаемости ограничил статистическую мощность анализа, в частности, не позволив подтвердить достоверность снижения доли выклева в группе 7 °C. Ко всему прочему, результаты данного исследования могут быть использованы при содержании лабораторной культуры рыб рода Nothobranchius, в частности для при контроле за развитием икры на различных субстратах и при определении оптимальных условий для развития эмбрионов.
5. Заключение
1. Кратковременный тепловой шок при 34 °C на стадии первой диапаузы не влияет на динамику развития и выживаемость икры, что отражает высокую эволюционную адаптацию эмбрионов N. guentheri к перегреву нерестового субстрата в естественных условиях.
2. Температурный шок при 7 °C и 16 °C приводит к существенному снижению выживаемости эмбрионов (до 49,7–56,3% к концу эксперимента), при этом основная гибель наблюдается в ранний период — со 2-х по 8-е сутки после стрессового воздействия.
3. Холодовой стресс (7 °C) вызывает выраженную задержку развития за счет удлинения стадии первой диапаузы. Это приводит к смещению начала выклева жизнеспособных личинок с 14-х на 26-е сутки после воздействия.
4. Несмотря на высокую смертность и задержку сроков развития при низких температурах, температурный шок не индуцирует видимых морфологических аномалий у N. guentheri. Можно предположить, что эмбрионы, пережившие фазу стресса, обладают достаточными компенсаторными механизмами для успешного завершения органогенеза и выклева.