Пространственно-демографическая структура травянистой растительности пригородных лесов под влиянием пастбищно-рекреационной дигрессии на примере территории неиспользуемых сельскохозяйственных земель в окрестности д.Лопатино (Березовский р-н, Красноярский край)
Пространственно-демографическая структура травянистой растительности пригородных лесов под влиянием пастбищно-рекреационной дигрессии на примере территории неиспользуемых сельскохозяйственных земель в окрестности д.Лопатино (Березовский р-н, Красноярский край)

Аннотация
В статье представлены результаты комплексного исследования структуры, обилия и видового разнообразия на трех опытных полигонах, находящихся в условиях сочетанного воздействия антропогенного пресса (рекреации, локального выпаса скота) и восстановительной лесной сукцессии. На основе сопряженного анализа таксационных характеристик древостоя (классов бонитета, возраста и сомкнутости крон) и ценотических параметров травянистого яруса (обилия по шкалам Друде и Ашихминой, проективного покрытия, минимального расстояния между особями) выявлены ключевые закономерности трансформации фитоценозов. Установлено, что на участках с разреженным древесным ярусом (проективное покрытие до 30%) антропогенная нагрузка приводит к синантропизации флоры, увеличению обилия устойчивых эксплерентов и формированию мозаично-очаговой структуры разнотравья. Выявлено, что смыкание крон березового молодняка (сомкнутость 40–50%) на сукцессионно более зрелом участке выступает в роли мощного фитогенного фильтра. Это приводит к затуханию антропогенного фактора, снижению общего видового богатства с 22 до 17 видов и падению проективного покрытия доминантных злаков. При этом ценотический фильтр вызывает структурную дифференциацию подпологового пространства: на фоне общего изреживания светолюбивых элементов активизируются процессы пространственной интеграции, где подрост березы выполняет роль механической опоры для лианоподобных форм (мышиный горошек (Vicia cracca)). Полученные данные эксплицируют динамику перехода фитосистем от луговой стадии к лесной в условиях урбанизированной среды.
1. Введение
Интенсификация антропогенного пресса на пригородные ландшафты и лесные экосистемы является одним из ключевых факторов, трансформирующих структуру и динамику растительного покрова
, . В условиях сочетанного воздействия рекреационных нагрузок и локального выпаса скота растительные сообщества подвергаются пастбищно-рекреационной дигрессии, которая проявляется в существенной перестройке фитоценозов, изменении видового состава, а также в уплотнении верхних почвенных горизонтов и ксерофитизации условий обитания .Живой напочвенный покров (ЖНП) выступает в роли наиболее чувствительного и лабильного индикатора антропогенной трансформации среды. Изменение его обилия, видового разнообразия и пространственно-демографической структуры позволяет оперативно диагностировать ранние стадии деградации экосистем еще до проявления видимых патологических изменений в древесном ярусе
.Параллельно с процессами антропогенной деградации в нарушенных экотопах нередко протекают восстановительные сукцессии, связанные с развитием древесного яруса пионерных пород
, . По мере смыкания лесного полога и формирования эдификаторного влияния деревьев происходит интерференция двух разнонаправленных векторов развития фитосистемы: внешнего антропогенного пресса и внутреннего ценотического контроля, опосредованного перехватом световых и почвенных ресурсов кронами и корневыми системами древесных растений. Изучение этого динамического баланса имеет фундаментальное значение для прогнозирования сукцессионных трендов и разработки программ рационального природопользования.Несмотря на обширный пул геоботанических работ, закономерности трансформации демографических параметров травянистых сообществ (таких как среднее минимальное расстояние между особями в увязке с проективным покрытием и обилием по шкале Друде) в условиях наложения антропогенеза на восстановительную лесную сукцессию остаются малоизученными.
Целью данной работы являлась оценка обилия, видового разнообразия и пространственно-демографической структуры травянистой растительности на участках с различной интенсивностью антропогенной нагрузки и степенью сформированности древесного яруса.
2. Методы и принципы исследования
Полевые геоботанические исследования выполнялись в течение вегетационного периода 2020–2025 гг. на трех экспериментальных участках (полигонах), характеризующихся различной степенью антропогенной нагрузки (рис.1). Закладывались пробные площадки площадью по 400м2.
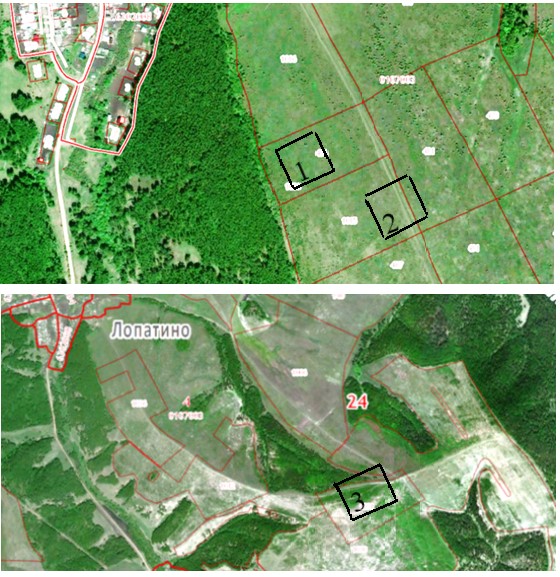
Рисунок 1 - Расположение пробных площадок
Для детального анализа пространственно-демографической структуры популяций измерялись следующие параметры:
- проективное покрытие (%) видов определялось визуально;
- среднее минимальное расстояние между особями (см) оценивалось методом «ближайшего соседа» (путем измерения расстояния от случайно выбранных учетных экземпляров до ближайшего растения того же вида
.Для оценки эдификаторного влияния верхнего полога на травянистую растительность определялись основные таксационные показатели древесных пород. Класс бонитета устанавливался по шкале М. М. Орлова на основе соотношения среднего возраста и средней высоты древостоя, что позволяло судить о потенциальной продуктивности и лесорастительных условиях экотопа
.Проективное покрытие древесного яруса (%) (сомкнутость крон) оценивалось визуально по доле площади проекций крон на земную поверхность.
3. Основные результаты
На исследуемой территории верхний ярус участков дифференцирован по видовому составу, возрастной структуре и сомкнутости крон (таблицы 1 и 2).
Обилие и видовое разнообразие травянистой растительности на исследуемой территории
Друде — обилие вида по шкале Друде (Soc — фоновое, Cop 3–Cop 1 — обильное, sp — изреженное, Sol — единичное, Un — единичные экземпляры); П — проективное покрытие вида, %. Значок «–» указывает на отсутствие вида на участке. Для единичных находок (Un) покрытие условно принято менее 10%
Вид растения | Участок 1 | Участок 2 | Участок 3 | Среднее покрытие, % | Постоянство, % | |||
Друде | П, % | Друде | П, % | Друде | П, % | |||
Марь белая (Chenopodium album) | sp | 30–10 | sp | 30–10 | - | - | 13,3 | 66,7 |
Клевер (Trifolium spp.) | Cop 2 | 50–70 | Cop 1 | 30–50 | sp | 30–10 | 40,0 | 100 |
Осот полевой (Sonchus arvensis) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Вьюнок полевой (Convolvulusarvensis) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Пырей (Elytrigia spp) | Cop 3 | 70–90 | Cop 2 | 50–70 | sp | 30–10 | 53,3 | 100 |
Горец птичий (Polygonum aviculare) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Козлобородник луговой (Tragopogon pratensis) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Ширица запрокинутая (Amaranthus retroflexus) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Лебеда (Atriplex spp) | Cop 3 | 70–90 | Cop 2 | 50–70 | sp | 30–10 | 53,3 | 100 |
Горец почечуйный (Persicaria maculosa) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Тысячелистник обыкновенный (Achillea millefolium) | Cop 1 | 30–50 | Cop 1 | 30–50 | sp | 30–10 | 33,3 | 100 |
Медуница мягчайшая (Pulmonaria mollis) | Cop 1 | 30–50 | Cop 1 | 30–50 | sp | 30–10 | 33,3 | 100 |
Кострец безостный (Bromus inermis) | sp | 30–10 | sp | 30–10 | sp | 30–10 | 20,0 | 100 |
Гераль луговая (Geranium pratense) | sp | 30–10 | sp | 30–10 | - | - | 13,3 | 66,7 |
Брахитециум (Brachythecium spp) | Un | <10 | - | - | - | - | 1,7 | 33,3 |
Шиповник даурский (Rosa davurica) | Un | <10 | - | - | Un | <10 | 3,3 | 66,7 |
Горошек мышиный (Vicia cracca) | Cop 2 | 50–70 | Cop 2 | 50–70 | Cop 1 | 30–50 | 53,3 | 100 |
Кровохлебка лекарственная (Sanguisorba officinalis) | Sol | 10–30 | sp | 10–30 | Sol | 10–30 | 20,0 | 100 |
Кипрей (Epilobium spp.) | sp | 30–10 | Cop 1 | 30–50 | sp | 30–10 | 26,6 | 100 |
Подорожник (Plantago spp.) | sp | 30–10 | Cop 2 | 50–70 | sp | 30–10 | 33,3 | 100 |
Мятлик луговой (Poa pratensis) | Soc | 90–100 | Cop 3 | 70–90 | Cop 3 | 70–90 | 85,0 | 100 |
Пижма (Tanacetum spp) | Un | <10 | sp | 30–10 | Un | <10 | 10,0 | 100 |
Лисохвост (Alopecurus spp) | Cop 3 | 70–90 | Cop 3 | 70–90 | Cop 2 | 50–70 | 73,3 | 100 |
Таблица 2 - Классы бонитета древостоя
Древесная порода | Участок | Средний возраст | Средняя высота, м | Класс бонитета | Проективное покрытие, % |
Prunus padus L. | 1 | 7 | 2,5±0,5 | IV | 20,0±10,0 |
2 | - | - | - | - | |
3 | - | - | - | - | |
Populus tremula L | 1 | 6 | 5,0±0,5 | III | 20,0±10,0 |
2 | - | - | - | - | |
3 | 4 | 1,5±0,5 | IV | 20,0±10,0 | |
Salix L. | 1 | 8–9 | 6,0±0,5 | III | <10,0 |
2 | - | - | - | - | |
3 | - | - | - | - | |
Betula L. | 1 | <10 | 3,5±0,5 | III | 20,0±10,0 |
2 | 5 | 2,0±0,5 | III | 20,0±10,0 | |
3 | 10 | 3,0±0,5 | III | 45,0±5,0 | |
Pinus L | 1 | 2–12 | 3,0±0,5 | IV | 20,0±10,0 |
2 | <7 | 1,5±0,5 | III | <10 | |
3 | 8–11 | 2,5±0,5 | III | <10 |
Всего на трех участках зафиксировано 23 таксона живого напочвенного покрова (ЖНП). Распределение видового богатства по участкам неравномерно: максимальное число видов отмечено на участке № 1 (22 вида), минимальное — на участке № 3 (17 видов). При этом на всех участках зарегистрировано ядро из 15 постоянных видов разнотравья и злаков (клевер (Trifolium), осот полевой (Sonchus arvensis), вьюнок полевой (Convolvulus arvensis), пырей (Elytrigia), горец птичий (Polygonum aviculare), козлобородник луговой (Tragopogon pratensis), ширица запрокинутая (Amaranthus retroflexus), лебеда (Atriplex), горец почечуйный (Persicaria maculosa), тысячелистник обыкновенный (Achillea millefolium), медуница мягкая (Pulmonaria), кострец безостый (Bromus inermis), горошек мышиный (Vicia cracca), лисохвост (Alopecurus), мятлик луговой (Poa pratensis)). Полная элиминация отдельных таксонов (марь белая (Chenopodium album), герань луговая (Geranium pratense), мхов (Brachythecium)) зафиксирована на участке № 3.
По характеру изменения обилия, проективного покрытия и минимального расстояния между особями, травянистые растения разделены на три группы:
1) виды с регрессионным трендом (снижение обилия от участка 1 к участку 3): мятлик луговой (Poa pratensis), пырей (Elytrigia), лебеда (Atriplex), клевер (Trifolium);
2) виды с прогрессивным трендом: подорожник (Plantago), горошек мышиный (Vicia cracca);
3) стабильно изрезанная группа: девять видов разнотравья (осот полевой (Sonchus arvensis), вьюнок полевой (Convolvulus arvensis), горец птичий (Polygonum aviculare), козлобородник луговой (Tragopogon pratensis), ширица запрокинутая (Amaranthus retroflexus), горец почечуйный (Persicaria maculosa), кострец безостый (Bromus inermis), кровохлебка лекарственная (Sanguisorba officinalis), пижма (Tanacetum)).
4. Обсуждение
Структура, обилие и видовое разнообразие живого напочвенного покрова (ЖНП) на исследуемых участках отражают различные стадии дигрессии фитоценоза под влиянием сочетанных факторов антропогенного пресса (рекреации и локального выпаса скота) и восстановительной сукцессии древесного яруса.
Сравнительный анализ ЖНП свидетельствует о высоком уровне антропогенной трансформации участков № 1 и № 2. Наличие в составе фитоценозов таких видов, как марь белая (Chenopodium album), горец птичий (Polygonum aviculare), ширица запрокинутая (Amaranthus retroflexus) и осот полевой (Sonchus arvensis), классифицирует данные группировки как синантропизированные.
Участок № 1 демонстрирует начальную фазу пастбищно-рекреационной дигрессии. Как отмечают В. В. Тимофеева и С. М. Синькевич
, умеренный антропогенный пресс часто приводит к парадоксальному увеличению видового богатства (до 22 видов на данном участке) за счет внедрения рудеральных элементов в нарушенные микроэкотопы. Высокое обилие мятлика лугового (Poa pratensis) обусловлено его исключительной устойчивостью к уплотнению почвы и вытаптыванию, что согласуется с закономерностями, описанными в работе . В международных исследованиях последних лет также подчеркивается, что длиннокорневищные злаки формируют плотную дернину, выступающую буфером против механических нагрузок на экосистему.Участок № 2 подвержен более выраженной антропогенной нагрузке. Выпадение мезофитного мха Brachythecium и переход клевера (Trifolium) с позиций Cop 2 на Cop 1 указывают на ксерофитизацию условий, вызванную разрушением лесной подстилки и уплотнением верхних почвенных горизонтов, что является классическим маркером рекреационного воздействия на пригородные леса. При этом фитоценотическую стабильность сохраняют только устойчивые эксплеренты (лебеда (Atriplex), пырей (Elytrigia), лисохвост (Alopecurus)), имеющие развитую корневую систему.
Параметр «среднее минимальное расстояние между особями» в контексте антропогенеза выступает индикатором устойчивости популяций к механическому повреждению.
На участках № 1 и № 2 для рудерального разнотравья (горец почечуйный (Persicaria maculosa), тысячелистник обыкновенный (Achillea millefolium), вьюнок полевой (Convolvulus arvensis) зафиксировано расстояние sp (изрежено)), что свидетельствует об их мозаично-очаговом распределении, приуроченном к краям тропиночной сети или местам локального нарушения дернины.
Разреженность древостоя березы (Betula, покрытие 10–30%) и сосны (Pinus, <10%) на участке № 2 облегчает доступ на территорию крупного рогатого скота или человека, что подтверждается резким увеличением обилия подорожника (Plantago) до Cop 2 (расстояние сокращается до 20–40 см, покрытие возрастает до 50–70%). Согласно исследованиям
, выпас скота и пешеходная нагрузка кардинально меняют пространственную архитектонику ЖНП: расстояние между уязвимыми видами увеличивается, в то время как розеточные гемикриптофиты образуют плотные кластеры. Подобная фрагментация растительного покрова может снижать общую устойчивость луговых сообществ к дальнейшей деградации.Участок № 3 демонстрирует принципиально иную ценотическую ситуацию. Обеднение флористического состава (17 видов) и полная элиминация мари белой (Chenopodium album) и герани луговой (Geranium pratense) здесь вызваны не усилением антропогенеза, а смыканием крон березы (Betula, III класс бонитета, покрытие 40–50%). По мере увеличения возраста древостоя до 10 лет снижается доступность участка для выпаса и рекреации. Происходит затухание антропогенного фактора и активизация фитогенного поля березы. Внедрение березы перехватывает световые ресурсы и влагу, переводя светолюбивые рудеральные виды в категорию депрессивных. Обилие мятлика лугового (Poa pratensis) снижается с Soc до Cop 3, а пырея (Elytrigia) и лебеды (Atriplex) редуцируются до sp (покрытие падает до 10–30%). Единственным видом, наращивающим присутствие, становится мышиный горох (Vicia cracca), способный использовать подрост березы в качестве опоры, что позволяет ему нивелировать дефицит освещения в нижнем ярусе экосистемы.
5. Заключение
Таким образом, живой напочвенный покров исследуемой территории находится под перекрестным влиянием двух разнонаправленных векторов: антропогенной дигрессии (доминирующей на разреженных участках № 1 и № 2) и восстановительной лесной сукцессии (участок № 3). Обилие видов-индикаторов (подорожник (Plantago), горец птичий (Polygonum aviculare) и падение проективного покрытия лесо-лугового разнотравья маркируют начальные стадии пастбищно-рекреационной трансформации ландшафта, которая в дальнейшем успешно блокируется естественным возобновлением березового и соснового древостоев.