Сравнительная оценка моделей роста и влияния пола на точность прогноза живой массы сибирского осетра (Acipenser baerii Brandt, 1869), выращиваемого в условиях УЗВ
Сравнительная оценка моделей роста и влияния пола на точность прогноза живой массы сибирского осетра (Acipenser baerii Brandt, 1869), выращиваемого в условиях УЗВ

Аннотация
Прогноз живой массы — необходимый элемент планирования в товарном осетроводстве, однако для сибирского осетра (Acipenser baerii), выращиваемого в УЗВ, сравнительная оценка прогностической способности разных классов моделей ранее не проводилась. Работа выполнена на основе индивидуальных измерений 386 меченых особей (192 самца, 194 самки) в течение 3 лет (12 бонитировок). Средняя масса возросла с 345 до 7314 г, удельная скорость роста снизилась с 0,44 до 0,07–0,19 %/сут.
Сопоставлены логистическая модель, модели Гомперца и фон Берталанфи, смешанная нелинейная модель, линейная регрессия и случайный лес. Все нелинейные модели описывают данные с близкой точностью (R2 = 0,86–0,87), но их прогнозы расходятся на 36%; асимптотическая масса (11101 г) неидентифицируема и не подлежит содержательной интерпретации. Межиндивидуальная изменчивость асимптоты (SD∞ = 3226 г) в 14,5 раза превышает остаточную (SDR = 222 г). Установлен половой диморфизм роста: к концу наблюдений разница средней массы составила 19,9% (p = 0,004). Учёт пола снижает ошибку смешанной модели на 22,6–24,8%, но почти не влияет на модели, использующие текущую массу особи. Медианная ошибка лучших моделей составила 3,0–6,9% на одну бонитировку и 4,9–8,2% на две.
1. Введение
Осетровые (Acipenseridae) относятся к числу наиболее коммерчески ценных объектов мировой аквакультуры. Однако к концу 1990-х годов их природные запасы оказались на критическом уровне из-за браконьерства, зарегулирования речного стока и разрушения нерестилищ, особенно в Каспийском и Азово-Черноморском бассейнах
. Почти все виды семейства были включены в Приложение II СИТЕС, а промысел в естественных водоемах полностью прекращен . Единственным источником осетровой продукции стала аквакультура, которая не только компенсировала утрату природных уловов, но и многократно их превзошла. В 2015 году объем товарного выращивания осетровых достиг 129,6 тыс. тонн — почти в четыре раза выше показателей вылова 1970–1980-х годов. К 2017 году в мире насчитывалось 2329 товарных хозяйств, из которых 54% сосредоточено в Китае и 24% — в России. Производство пищевой икры также стабильно растет: в 2017 году мировой объем составил 364 тонны, причем лидерами стали Китай (>100 т), Россия (49 т), Италия (43 т) и Франция (37 т) .Основным объектом, обеспечившим этот рост, стал сибирский осетр (Acipenser baerii Brandt, 1869). Благодаря высокой экологической пластичности этот вид выращивается более чем в 50 странах и занимает доминирующее положение как в производстве товарного мяса (39,5% мирового объема), так и в икорном секторе (31%). Столь широкое распространение стало возможным благодаря внедрению установок замкнутого водоснабжения (УЗВ), которые позволяют полностью контролировать температурный и гидрохимический режимы на всех этапах выращивания. По сравнению с прудовым и садковым методами, использование УЗВ сокращает сроки достижения товарной массы и полового созревания в 1,5–2 раза, ускоряет формирование ремонтно-маточных стад и повышает рентабельность производства
, , , .Однако управление производственным циклом в УЗВ невозможно без прогнозных инструментов. В промышленном осетроводстве необходимо заранее предвидеть момент достижения рыбой товарной массы, сроки разделения стада, отбраковки и пересадки, а при производстве икры — наступление физиологической готовности самок. В предыдущей работе мы описали динамику роста ленской популяции сибирского осетра в УЗВ и получили уравнения для оценки живой массы по морфометрическим признакам
. Задача прогноза будущей массы — экстраполяции индивидуальной траектории роста за пределы имеющихся наблюдений — в ней не ставилась.Классический аппарат описания роста организмов представлен нелинейными функциями с насыщением: моделями фон Берталанфи
, Гомперца и Ричардса . Эти модели широко используются в ихтиологических исследованиях и фактически стали стандартом для описания размерно-возрастной зависимости . Однако выбор конкретной функции имеет существенное значение. Модели, статистически неразличимые в пределах, имеющихся данных, могут давать сильно различающиеся оценки предельных (асимптотических) размеров. Именно поэтому современная практика рекомендует сравнивать несколько моделей роста и выбирать наилучшую по статистическим критериям, а не фиксации одной функции до начала анализа .Отдельная проблема — высокая индивидуальная изменчивость. Темп роста существенно различается даже у особей сибирского осетра одного возраста, содержащихся в идентичных условиях, что приводит к дифференциации стада. Описание такой выборки единой кривой роста упрощает реальную картину. Корректным решением здесь видится использование нелинейных моделей со смешанными эффектами, где параметры роста рассматривались бы, как случайные величины, варьирующие между особями
. Однако это требует длительных наблюдений за индивидуально идентифицируемыми рыбами .В практике осетроводства для индивидуального учета рыб используют подкожные электронные метки (PIT-метки, микрочипы). Они позволяют бесконтактно считывать уникальный номер особи и автоматически вносить данные в электронную базу, что упрощает ведение длительных рядов наблюдений. Однако надежность таких меток варьирует: по данным зарубежных исследований, у осетровых она может составлять около 30% в зависимости от места имплантации и длительности эксперимента: часть меток перестает считываться, другие мигрируют в тканях или выпадают
. Утрата метки делает невозможным дальнейшее наблюдение за особью. Решением служит дублирование физического мечения генетической паспортизацией. Микросателлитный профиль, полученный при первичной идентификации, остается неизменным в течение всей жизни рыбы и позволяет восстановить ее идентификатор даже при полной утрате метки . Сочетание физического и генетического мечения обеспечивает непрерывность многолетних наблюдений, необходимую для построения достоверных моделей роста .Наряду с классическими подходами, в последние годы активно развиваются методы машинного обучения, не требующие заранее заданной формы зависимости
. Они показывают высокую точность при оценке массы рыб по морфометрическим признакам , однако их сопоставление с классическими моделями роста в целях прогноза (а не интерполяции) проводится редко. Строгая валидация на наблюдениях, отложенных во времени, применяется еще реже.Другой фактор, способный влиять на точность прогноза — половой диморфизм темпов роста. У осетровых он формируется постепенно, по мере созревания. До его наступления особи разного пола практически неразличимы по размерам и массе
. Момент начала расхождения размерно-массовых характеристик и его выраженность имеют прямое производственное значение, поскольку определяют целесообразность раздельного содержания самцов и самок после определения пола. Для сибирского осетра в УЗВ эти параметры остаются малоизученными, а влияние учета пола на точность прогноза живой массы ранее не оценивалось.Цель работы — определение прогностической способности нелинейных, линейных моделей и машинного обучения при прогнозе живой массы сибирского осетра, выращиваемого в установке замкнутого водоснабжения, а также количественная оценка вклада фактора пола в точность прогноза.
Для достижения цели решались следующие задачи:
· охарактеризовать динамику живой массы и линейных промеров;
· сопоставить нелинейные модели роста между собой и с линейными по критериям качества подгонки;
· выявить структуру индивидуальной изменчивости параметров роста;
· установить сроки формирования и выраженность полового диморфизма;
· оценить точность прогноза всеми рассмотренными классами моделей при валидации по времени в вариантах с учетом и без учета пола.
2. Методы и принципы исследования
Материалом для исследования послужила молодь сибирского осетра (Acipenser baerii), содержавшаяся в условиях опытно-экспериментальной установки замкнутого водоснабжения (УЗВ) ФГБНУ ФИЦ ВИЖ им. Л.К. Эрнста. Гидрохимический режим в течение всего эксперимента поддерживался на стабильном уровне: температура воды — 21,1 ± 0,05 °C, содержание растворенного кислорода — 7,8 ± 0,04 мг/л, нитриты — 0,060 ± 0,007 мг/л, нитраты — 30 ± 3,3 мг/л, аммонийный азот — менее 0,05 мг/л, pH — 7,6 ± 0,03.
Плотность посадки в ходе эксперимента поддерживали на среднем уровне 25 кг/м2; для этого по мере роста рыбы проводили плановые бонитировки, в ходе которых из группы выводили особей с наименьшими показателями роста в соответствии с задачами селекционной работы. Кормление осуществляли круглогодично полнорационными продукционными комбикормами для осетровых согласно рекомендациям производителя, для соответствующих размерно-массовых групп; кратность кормления составляла 4 раза в сутки.
В период с января 2023 г. по март 2026 г. проведено 12 плановых бонитировок. Исходная выборка включала 386 особей (192 самца, 194 самки), пол которых определен генетическим методом. Для индивидуальной идентификации использовали PIT-метки с дублированием генетической паспортизацией. На каждой бонитировке определяли живую массу (P, г), а также выполняли стандартные линейные промеры по общепринятой схеме
. Поскольку в настоящей работе для построения моделей роста и прогнозирования использовались только данные о живой массе и длине тела, из всего комплекса промеров для анализа были отобраны следующие показатели: длина тела (l₁, см) и длина всей рыбы (L, см). Остальные линейные показатели, хотя и регистрировались в ходе бонитировок, в данном исследовании не применялись.Коэффициент упитанности рассчитывали по Фультону, удельную скорость роста (SGR, %/сут) – как
В моделях живой массы в качестве независимой переменной использовано время от начала наблюдений t, лет. Сопоставлены четыре нелинейные модели. Модель Гомперца:
фон Берталанфи:
Логистическая:
Ричардса:
где W∞ — асимптотическая масса, k — константа скорости роста, b и t0 — параметры сдвига, m — параметр формы.
Все четыре нелинейные модели относятся к функциям с насыщением: по мере увеличения массы прирост постепенно замедляется, и кривая асимптотически приближается к предельному уровню. Такая кривая проходит через точку перегиба, в которой скорость прироста максимальна, после чего рост замедляется, выходя на плато. Наличие предела отличает эти модели от линейной и квадратичной регрессий, в которых расчетная масса возрастает неограниченно.
Параметры моделей имеют следующий смысл. W∞ (асимптотическая масса) – уровень, к которому кривая стремится с течением времени. По существу это масса, при которой рост практически прекращается. k (константа скорости роста) определяет, насколько быстро кривая приближается к этому уровню. Параметры сдвига b и t0 самостоятельного биологического значения не имеют и отвечают за положение кривой на оси времени. Параметр формы m в модели Ричардса определяет долю от W∞, на которой находится точка перегиба; в моделях Гомперца, фон Берталанфи и логистической эта доля фиксирована видом уравнения (≈0,37, 0,30 и 0,50 соответственно).
В качестве базовых моделей сравнения использованы линейная и квадратичная регрессии по времени. Подгонку всех моделей выполняли методом нелинейных наименьших квадратов (алгоритм Левенберга-Марквардта).
Индивидуальную изменчивость параметров роста учитывали в смешанной модели Гомперца, вводя случайные эффекты особи на W∞ и k. Такая модель описывает не одну усредненную кривую, а совокупность индивидуальных траекторий. Межиндивидуальное стандартное отклонение (SD∞) характеризует разброс асимптотической массы между особями, остаточное стандартное отклонение (SDR) — точность воспроизведения отдельного измерения. Сопоставление этих величин позволяет оценить, что в большей степени определяет наблюдаемый разброс массы: устойчивые различия между рыбами или случайная изменчивость измерений.
Фактор пола вводили как фиксированный эффект на W∞, на k или на оба параметра одновременно.
Модели сравнивались двумя способами. Критерий отношения правдоподобий (LRT) показывает, значимо ли более сложная модель улучшает описание данных по сравнению с более простой. Информационный критерий Акаике (AIC) также оценивает качество модели, но с поправкой на число параметров; предпочтение отдается модели с наименьшим значением AIC. Разница AIC более 10 единиц считается решающим аргументом в пользу лучшей модели.
2.1. Аллометрия
Связь живой массы с длиной тела описывали степенной функцией Хаксли :
где a — коэффициент пропорциональности, b — аллометрический коэффициент, отражающий соотношение увеличения длины к увеличению массы.
Параметры аллометрии оценивались линейной регрессией в логарифмической форме уравнения. Гипотеза об изометрии проверялась t-критерием для H0: b = 3.
2.2. Прогнозные модели и их валидация
Прогнозирующая способность моделей оценивалась по принципу временной валидации: обучение на первых K бонитировках (K = 6, 8, 9), прогноз — на последующие 1–4 бонитировки. Развернутые результаты приведены для K = 8; различия при других отсечках оговариваются в тексте.
Сопоставлялись следующие модели: индивидуальные нелинейные кривые, подобранные по траектории каждой особи, смешанная модель Гомперца, панельная линейная регрессия вида:
с взаимодействием, позволяющим описать замедление роста (регрессия называется панельной, поскольку строится сразу по всем особям и предсказывает будущую массу от текущей), алгоритм случайного леса (500 древ), использующий текущую массу, линейные параметры, упитанность, интервал прогноза и время от начала наблюдений, «наивный» прогноз, предполагающий сохранение массы неизменной.
Для смешанной модели, панельной регрессии и случайного леса каждый вариант рассчитывался дважды — без фактора пола и с его включением.
Точность прогноза оценивали по медианной абсолютной процентной ошибке (MedAPE) и медианному относительному смещению (bias) для каждого горизонта. В отличие от средней абсолютной процентной ошибки (MAPE), использованной для оценки качества подгонки популяционных моделей, MedAPE устойчива к единичным выбросам и лучше характеризует типичную точность прогноза.
2.3. Статистический анализ
Расчеты выполнены в среде R версии 4.3 с использованием пакетов nlme, minpack.lm и randomForest. Различия между полами оценивали U-критерием Манна-Уитни, различия между моделями — по информационным критериям и ошибке на отложенных во времени наблюдениях. Различия признавали статистически значимыми при p ≤ 0,05.
3. Основные результаты
За три года выращивания сибирского осетра в установке замкнутого водоснабжения средняя живая масса рыб увеличилась с 345 ± 70 г до 7314 ± 1504 г. Средняя длина тела возросла с 38,5 ± 2,9 см до 92,8 ± 5,8 см. Удельная скорость роста (SGR) закономерно снижалась с 0,44 %/сут в первом межбонитировочном интервале до минимальных значений (0,07 %/сут) к возрасту 2,2 года (шестая бонитировка), после чего наблюдался некоторый подъем до 0,13–0,19 %/сут к 3,8–3,9 годам (одиннадцатая и двенадцатая бонитировки соответственно). Коэффициент упитанности по Фультону увеличился с 0,60 до 0,89, что может свидетельствовать как об улучшении физиологического состояния рыб по мере роста, так и о накоплении репродуктивной массы у самок на поздних этапах (табл. 1).
Динамика живой массы, длины тела, упитанности и удельной скорости роста сибирского осетра по бонитировкам
коэффициент Фультона приведен в виде медианы, SGR – медианы за интервал от предыдущей бонитировки
№ | Возраст | n, гол. | Живая масса, г (M ± SD) | Длина тела l1, см (M ± SD) | K Фультона | SGR, %/сут |
1 | 9 мес. | 373 | 345 ± 70 | 38,5 ± 2,9 | 0,60 | – |
2 | 1 г. 1 мес. | 225 | 677 ± 174 | 47,6 ± 4,0 | 0,62 | 0,44 |
3 | 1 г. 5 мес. | 181 | 1051 ± 278 | 53,8 ± 4,5 | 0,66 | 0,38 |
4 | 1 г. 7 мес. | 174 | 1381 ± 356 | 58,7 ± 4,5 | 0,67 | 0,37 |
5 | 1 г. 10 мес. | 165 | 2167 ± 529 | 64,9 ± 5,1 | 0,76 | 0,49 |
6 | 2 г. 2 мес. | 146 | 3028 ± 691 | 72,3 ± 5,2 | 0,78 | 0,30 |
7 | 2 г. 4 мес. | 146 | 3260 ± 758 | 75,3 ± 5,3 | 0,75 | 0,11 |
8 | 2 г. 7 мес. | 143 | 3705 ± 874 | 77,4 ± 5,4 | 0,78 | 0,14 |
9 | 2 г. 11 мес. | 124 | 4110 ± 1039 | 80,0 ± 6,0 | 0,78 | 0,08 |
10 | 3 г. 2 мес. | 61 | 4403 ± 1122 | 82,5 ± 6,2 | 0,77 | 0,07 |
11 | 3 г. 8 мес. | 52 | 6058 ± 1221 | 88,6 ± 5,9 | 0,86 | 0,13 |
12 | 3 г. 11 мес. | 46 | 7314 ± 1504 | 92,8 ± 5,8 | 0,89 | 0,19 |
Индивидуальные траектории массы демонстрировали устойчивую дифференциацию: особи, более крупные на ранних этапах, сохраняли преимущество в течение всего периода наблюдений; при этом размах индивидуальных значений к концу эксперимента превысил двукратный, что указывает на значительную вариабельность ростовых характеристик даже в условиях идентичного содержания (рис. 1).
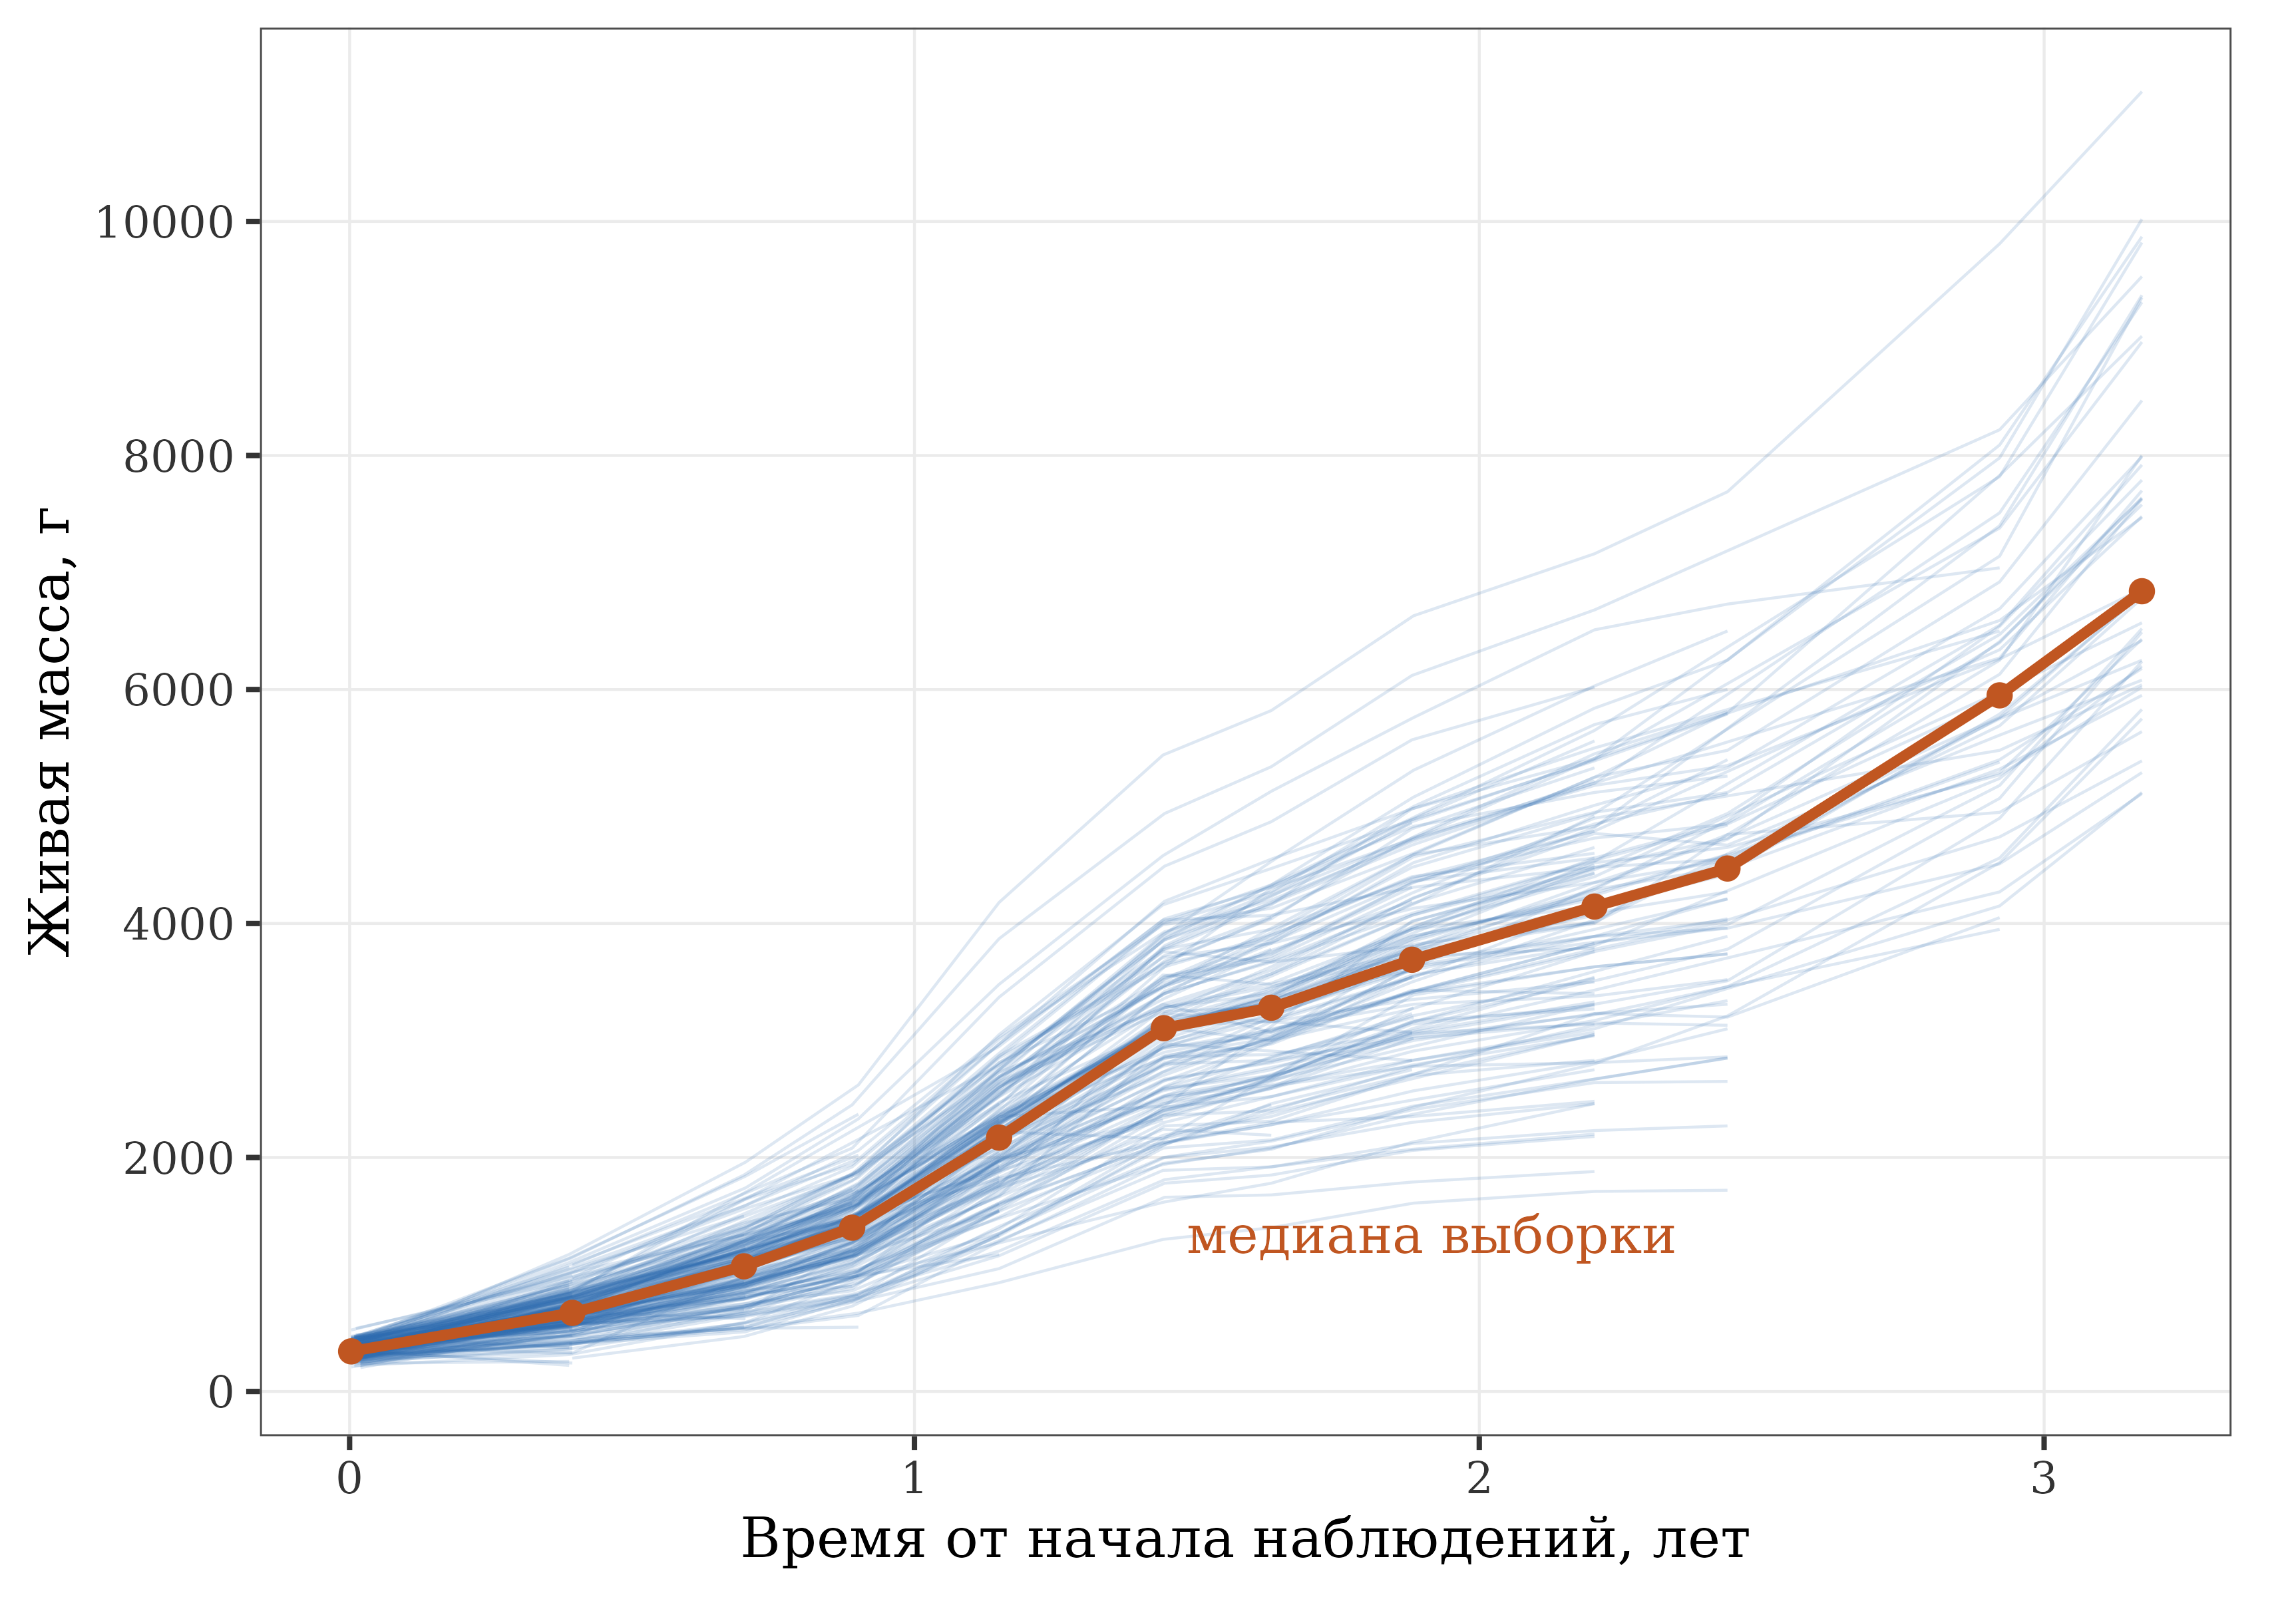
Рисунок 1 - Индивидуальные траектории живой массы сибирского осетра (386 особей) и медиана выборки по бонитировкам
До возраста 1,8 года (пятая бонитировка) статистически значимых различий в массе между самцами и самками не наблюдалось. Начиная с 2,2 лет самки стали опережать самцов по темпу массонакопления. К 3,8 года разница в средней массе достигла 16,0% (p = 0,014), а к 3,9 года — 19,9% (p = 0,004) (табл. 2).
Живая масса самцов и самок сибирского осетра по бонитировкам
разница приведена относительно средней массы самцов; p – уровень значимости U-критерия Манна-Уитни
№ | Возраст | Самцы, n | Самцы, г (M ± SD) | Самки, n | Самки, г (M ± SD) | Разница, % | p |
1 | 9 м. | 186 | 351 ± 71 | 187 | 339 ± 69 | -3,4 | 0,163 |
2 | 1 г. 1 мес. | 121 | 684 ± 174 | 104 | 669 ± 175 | -2,3 | 0,767 |
3 | 1 г. 5 мес. | 95 | 1054 ± 283 | 86 | 1048 ± 274 | -0,6 | 0,850 |
4 | 1 г. 7 мес. | 90 | 1391 ± 372 | 84 | 1370 ± 340 | -1,5 | 0,865 |
5 | 1 г. 10 мес. | 84 | 2183 ± 537 | 81 | 2151 ± 524 | -1,4 | 0,709 |
6 | 2 г. 2 мес. | 75 | 3008 ± 712 | 71 | 3050 ± 673 | +1,4 | 0,725 |
7 | 2 г. 4 мес. | 75 | 3199 ± 771 | 71 | 3324 ± 744 | +3,9 | 0,386 |
8 | 2 г. 7 мес. | 73 | 3627 ± 873 | 70 | 3786 ± 874 | +4,4 | 0,330 |
9 | 2 г. 11 мес. | 68 | 3988 ± 1020 | 56 | 4257 ± 1052 | +6,7 | 0,152 |
10 | 3 г. 2 мес. | 34 | 4318 ± 1019 | 27 | 4510 ± 1251 | +4,4 | 0,766 |
11 | 3 г. 8 мес. | 28 | 5641 ± 987 | 24 | 6545 ± 1305 | +16,0 | 0,014 |
12 | 3 г. 11 мес. | 23 | 6653 ± 1129 | 23 | 7976 ± 1560 | +19,9 | 0,004 |
Абсолютный прирост массы за период с 2,2 до 3,8 лет у самок был на 47,4% выше, чем у самцов (3299 ± 714 г против 2238 ± 624 г, p <0,001), что подтверждает ускоренный рост самок в преднерестовый период (рис. 2).
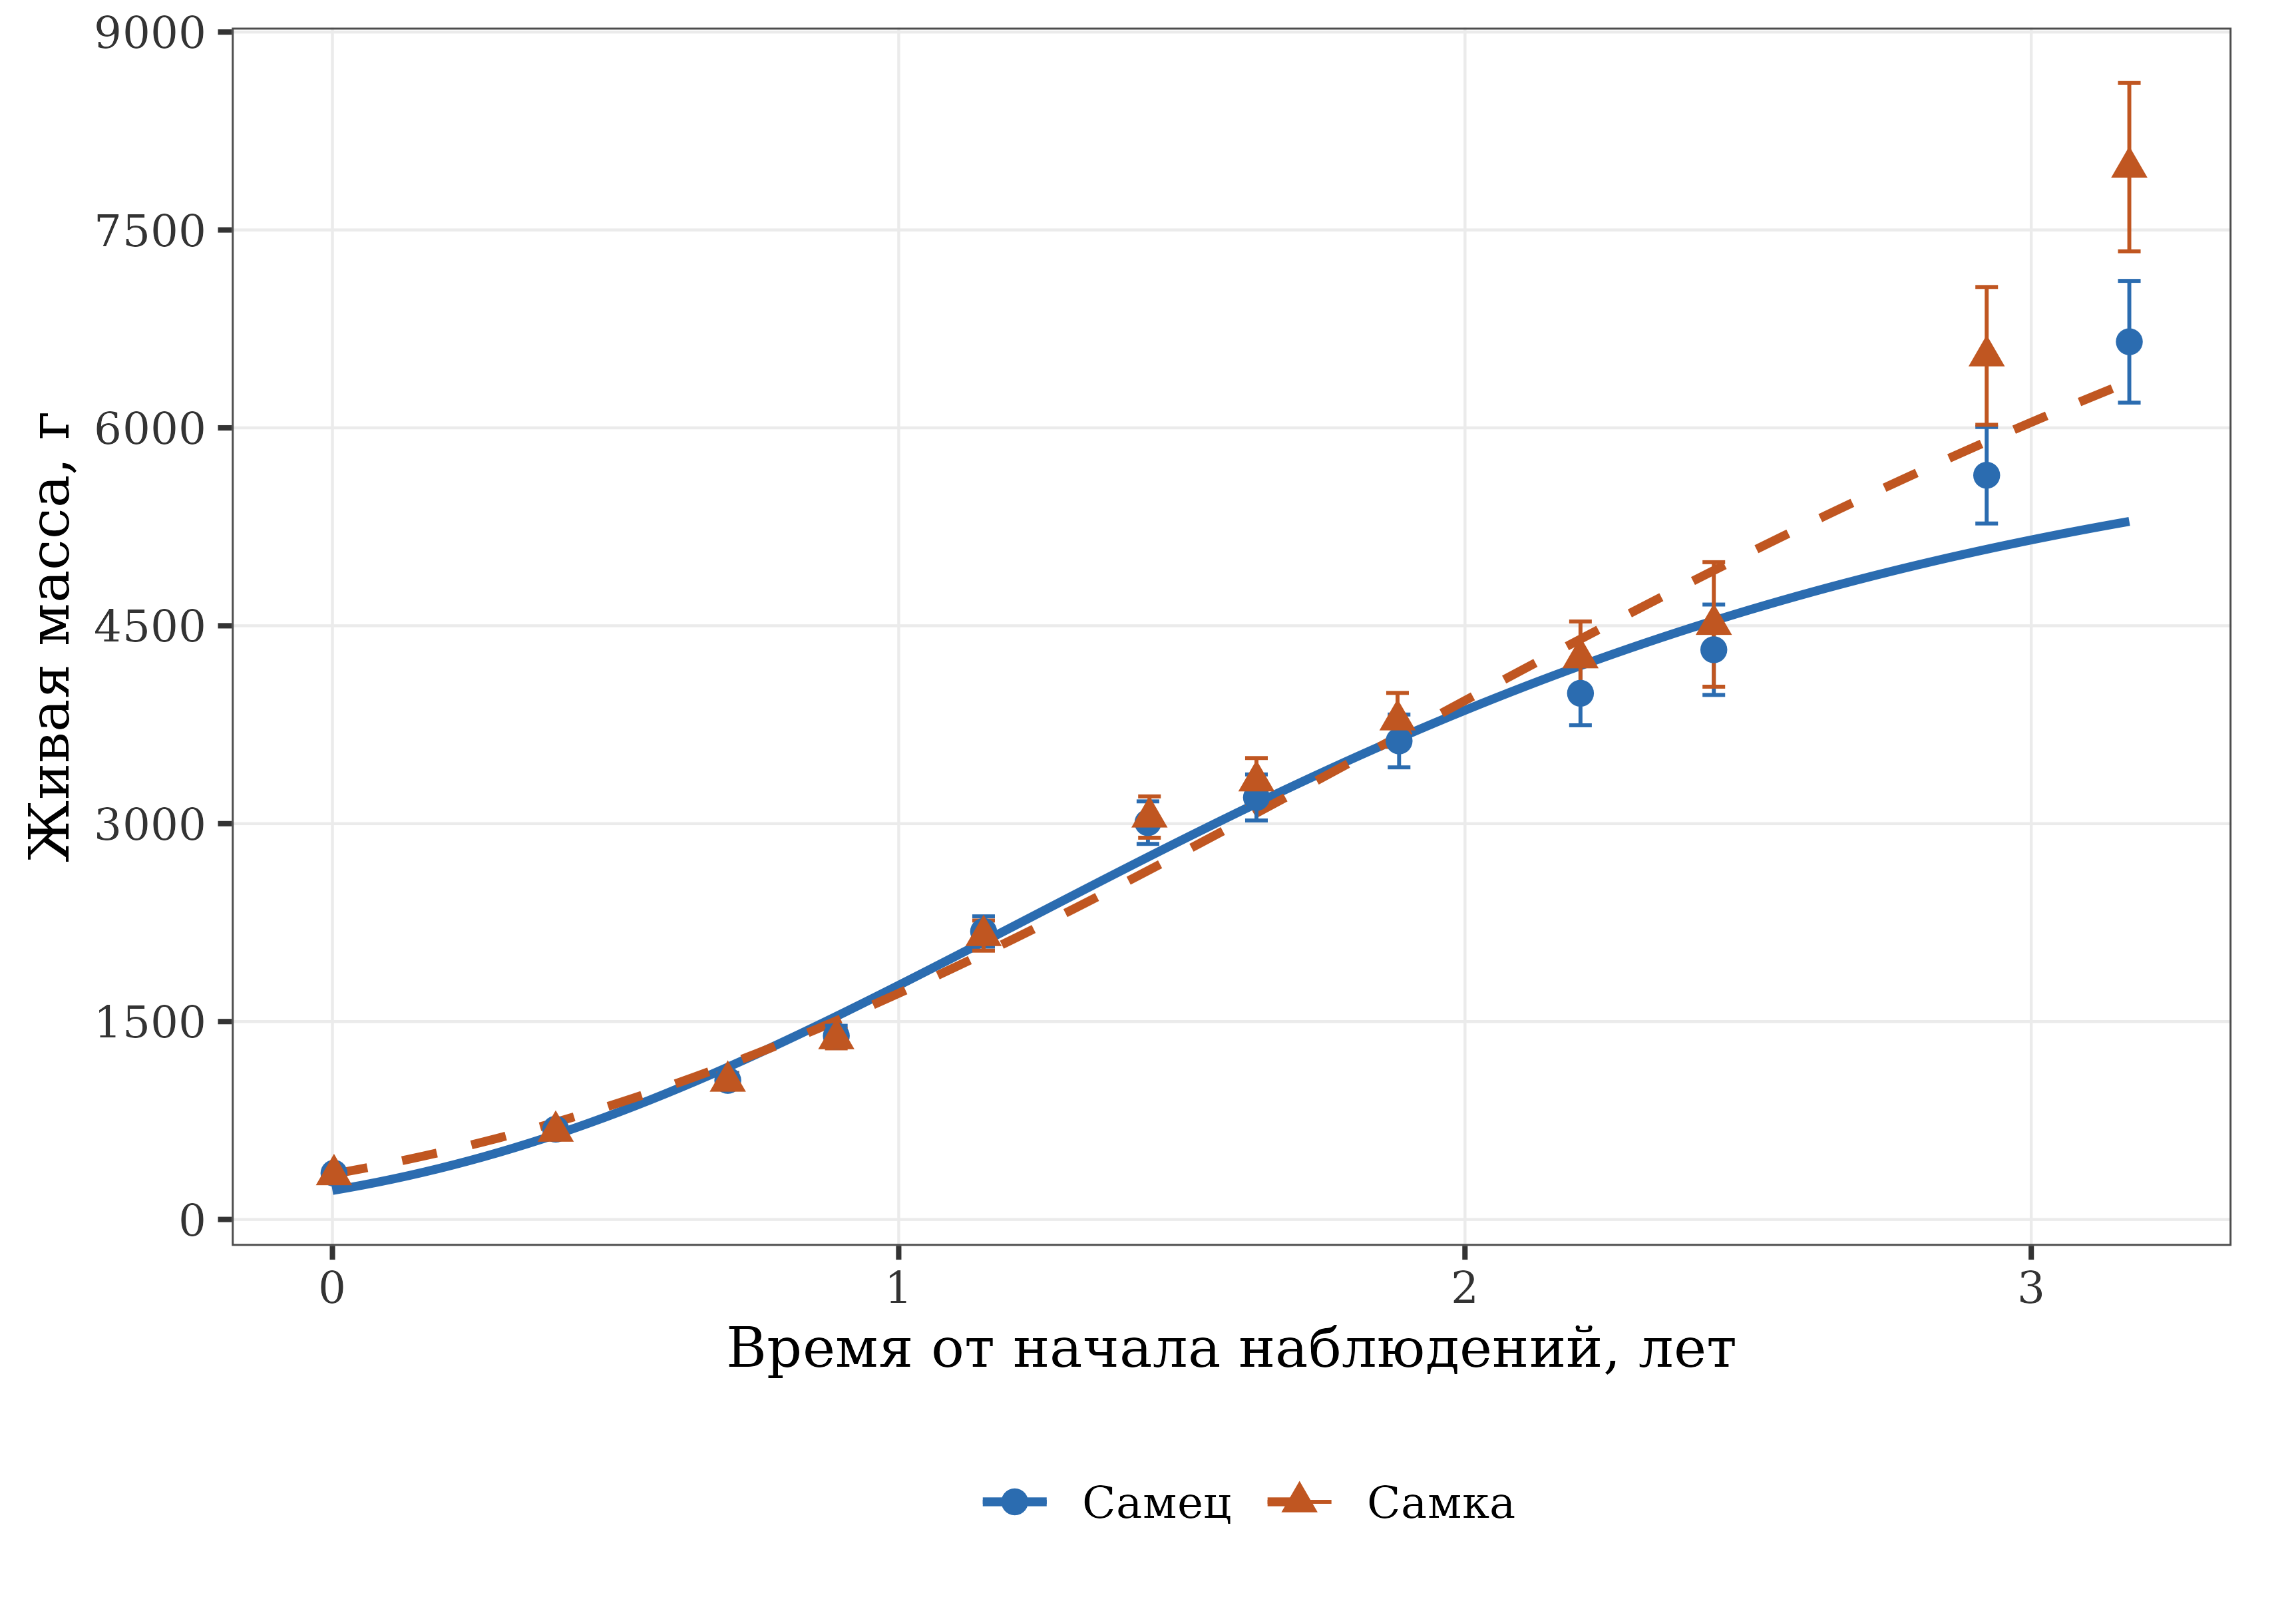
Рисунок 2 - Живая масса самцов и самок: точки – средние по бонитировкам с 95-процентными доверительными интервалами, линии – популяционные кривые смешанной модели Гомперца с фактором пола
Коэффициент детерминации (R2) варьировал в узком диапазоне: 0,86-0,87, среднеквадратичная ошибка (RMSE) — от 671 до 695 г (табл. 3). Наименьшие значения информационного критерия Акаике (AIC) получены для модели фон Берталанфи (29116) и квадратичной регрессии (29116), наибольшие — для логистической (29245) и линейной (29285) моделей. Важно отметить, что квадратичная регрессия, не имеющая биологической интерпретации, по статистическим критериям не уступала нелинейным моделям с насыщением, что связано с тем, что период наблюдений охватывает лишь восходящий участок кривой роста, без выхода на фазу замедления.
Параметры и критерии качества популяционных моделей роста живой массы
95-процентный доверительный интервал W∞ модели Гомперца составляет 10056-12441 г при максимальной наблюдаемой массе 11110 г.
Модель | Оценка W∞, г | AIC | RMSE, г | MAPE, % | R2 |
Квадратичная регрессия | – | 29 116 | 671 | 25,7 | 0,87 |
фон Берталанфи | 16 594 | 29 116 | 671 | 22,8 | 0,87 |
Гомперца | 11 101 | 29 140 | 675 | 23,3 | 0,87 |
Ричардса | 11 098 | 29 142 | 675 | 23,3 | 0,87 |
Логистическая | 7 811 | 29 245 | 695 | 31,0 | 0,86 |
Линейная регрессия | – | 29 285 | 702 | 41,0 | 0,85 |
Оценки асимптотической массы (W∞) существенно варьировали в зависимости от выбранной модели: от 7,8 кг (логистическая) до 16,6 кг (модель фон Берталанфи). Для модели Гомперца точечная оценка W∞ составила 11101 г при 95% доверительном интервале 10056-12441 г, что практически совпадает с максимальной наблюдаемой массой 11110 г. Это указывает на то, что параметр W∞ на данном интервале наблюдений является статистически неидентифицируемым: данные не содержат достаточной информации для его надежного оценивания.
Наиболее наглядно это проявляется при экстраполяции: в пределах периода наблюдений (до 3 лет) кривые всех моделей практически совпадают, однако при прогнозе на пятый год выращивания расхождения между моделями достигают 36% (от 7,7 до 10,5 кг). Таким образом, модели, неразличимые по качеству подгонки в пределах имеющихся данных, дают принципиально разные прогнозы за их пределами (рис. 3).
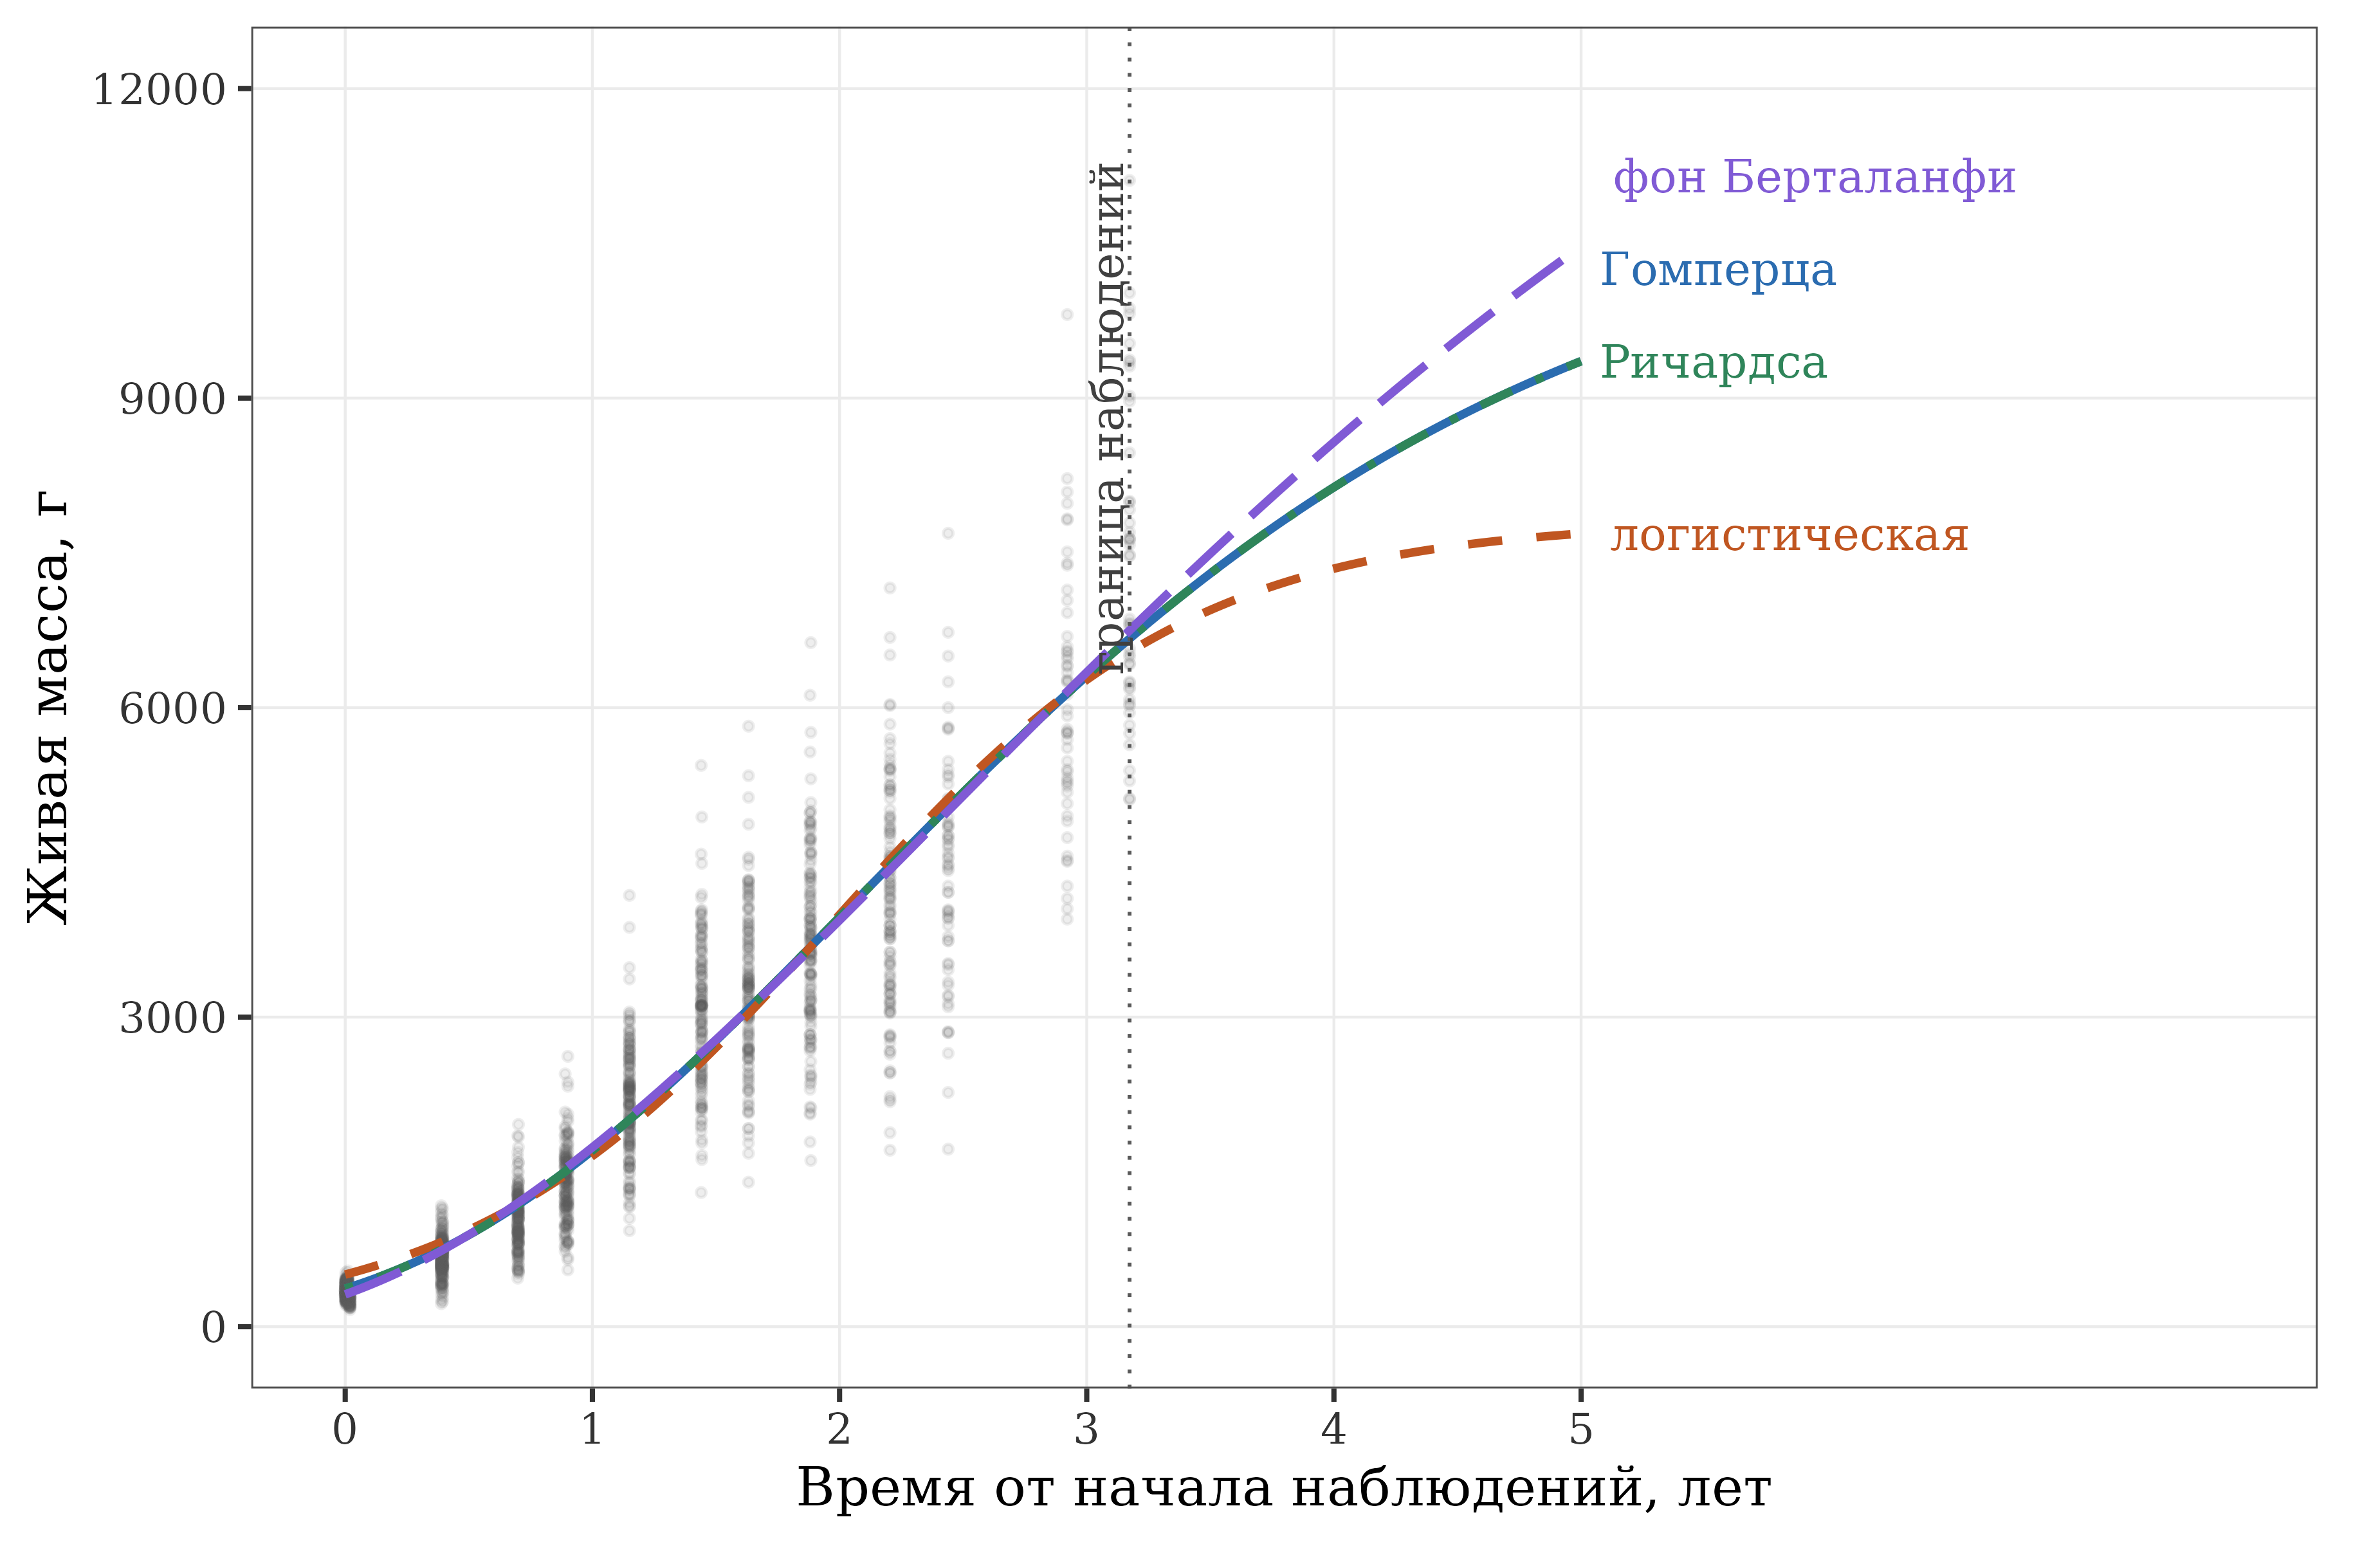
Рисунок 3 - Нелинейные модели роста живой массы: совпадение в пределах периода наблюдений и расхождение при экстраполяции
Введение случайного эффекта особи на асимптотическую массу снижает информационный критерий Акаике с 29140 до 26615, дополнительное введение случайного эффекта на константу скорости роста — до 26182 (критерий отношения правдоподобий 437,1; p < 0,001). В полной модели межиндивидуальное стандартное отклонение асимптотической массы составляет 3226 г при остаточном стандартном отклонении 222 г, то есть разброс ростового потенциала между особями превосходит остаточное стандартное отклонение в 14,5 раз. Корреляция между случайными эффектами асимптоты и константы скорости имеет отрицательное и высокое значение (r = -0,87): особи с более высокой асимптотой достигают ее медленнее.
Включение пола в смешанную модель статистически обосновано при всех рассмотренных вариантах, причём наилучший результат даёт одновременное влияние на асимптоту и константу скорости (табл. 4): критерий отношения правдоподобий составляет 231,9 при p < 0,001. Самки характеризуются более высокой асимптотической массой (+3457 ± 341 г) и более низкой константой скорости (-0,330 ± 0,021), что и приводит к перекрещиванию ростовых кривых: расхождение в пользу самок формируется приблизительно с 1,6 года наблюдений и к третьему году достигает 17,3 %. Начальный участок кривых (до 0,7 года), на котором модель предсказывает незначительное преимущество самок, следует рассматривать как артефакт параметризации, поскольку наблюдаемые средние значения (табл. 2) на этом отрезке различий не выявляют.
Параметры смешанной модели Гомперца с фактором пола
модель со случайными эффектами особи на W∞. Включение пола в оба параметра: критерий отношения правдоподобий 231,9; p < 0,001
Параметр | Оценка | Стандартная ошибка | t | p |
W∞, самцы, г | 6109 | 184 | 33,19 | < 0,001 |
W∞, эффект пола (самки), г | +3457 | 341 | 10,15 | < 0,001 |
b (параметр сдвига) | 3,326 | 0,023 | 144,81 | < 0,001 |
k, самцы, год−1 | 0,990 | 0,016 | 62,90 | < 0,001 |
k, эффект пола (самки), год−1 | -0,330 | 0,021 | -15,97 | < 0,001 |
При обучении на первых восьми бонитировках и прогнозировании на последующие (табл. 5, рис. 4) медианная абсолютная процентная ошибка (MedAPE) на один шаг вперед варьирует от 3,0 % для индивидуальной логистической модели до 10,4% для индивидуальной модели фон Берталанфи. На два шага лучшие результаты показывают логистическая модель (4,9%) и случайный лес (6,7%); на три — обе модели Гомперца (8,0%) и индивидуальная линейная модель (8,2%); на четыре — модель фон Берталанфи (10,5%) и индивидуальная линейная модель (12,4%). Логистическая модель, наиболее точная на коротком горизонте (один шаг), к четвертому шагу теряет точность почти в двенадцать раз (ошибка возрастает до 35,3%), тогда как «наивный» прогноз — примерно в пять раз (с 9,2 до 43,8%).
Медианная абсолютная ошибка прогноза живой массы (MedAPE, %) при обучении на бонитировках 1-8
горизонт указан в числе бонитировок вперед. Для моделей, где пол может быть учтен как фактор, приведены оба варианта
Модель | Пол в модели | Горизонт прогноза, бонитировок | |||
+1 | +2 | +3 | +4 | ||
Логистическая, индивидуальная | Нет | 3,0 | 4,9 | 22,4 | 35,3 |
Случайный лес | Нет | 4,2 | 6,9 | 15,0 | 30,0 |
Случайный лес | Да | 4,5 | 6,7 | 14,7 | 29,4 |
Линейная, индивидуальная | Нет | 5,6 | 9,2 | 8,2 | 12,4 |
Линейная панельная | Да | 8,9 | 20,8 | 31,0 | 31,2 |
Линейная панельная | Нет | 9,1 | 21,9 | 32,5 | 31,6 |
Гомперца, смешанная модель | Да | 6,5 | 8,2 | 8,0 | 17,0 |
Гомперца, смешанная модель | Нет | 8,4 | 10,9 | 8,8 | 13,9 |
Гомперца, индивидуальная | Нет | 6,9 | 7,7 | 8,0 | 17,9 |
фон Берталанфи, индивидуальная | Нет | 10,4 | 13,2 | 8,5 | 10,5 |
Наивный прогноз | Нет | 9,2 | 15,2 | 32,8 | 43,8 |
На длинных горизонтах прогнозирования большинство моделей с насыщением дают систематически заниженные оценки будущей массы (медианное смещение достигает 35%). Причина заключается в том, что асимптотическая масса (теоретический предел роста) на имеющемся интервале наблюдений не может быть надежно оценена, поэтому модели завышают скорость выхода кривой на плато. Исключение составляет модель фон Берталанфи, которая на горизонте 3-х бонитировок, напротив, дает завышенный прогноз (+6,3%). При обучении на более раннем материале (первые шесть бонитировок) эти модели, напротив, резко завышают прогноз: смещение модели Гомперца достигает +110,8% на пятом шаге, тогда как индивидуальная линейная модель удерживает ошибку в пределах 6,2–11,7% на горизонте планирования до 6-ти бонитировок.
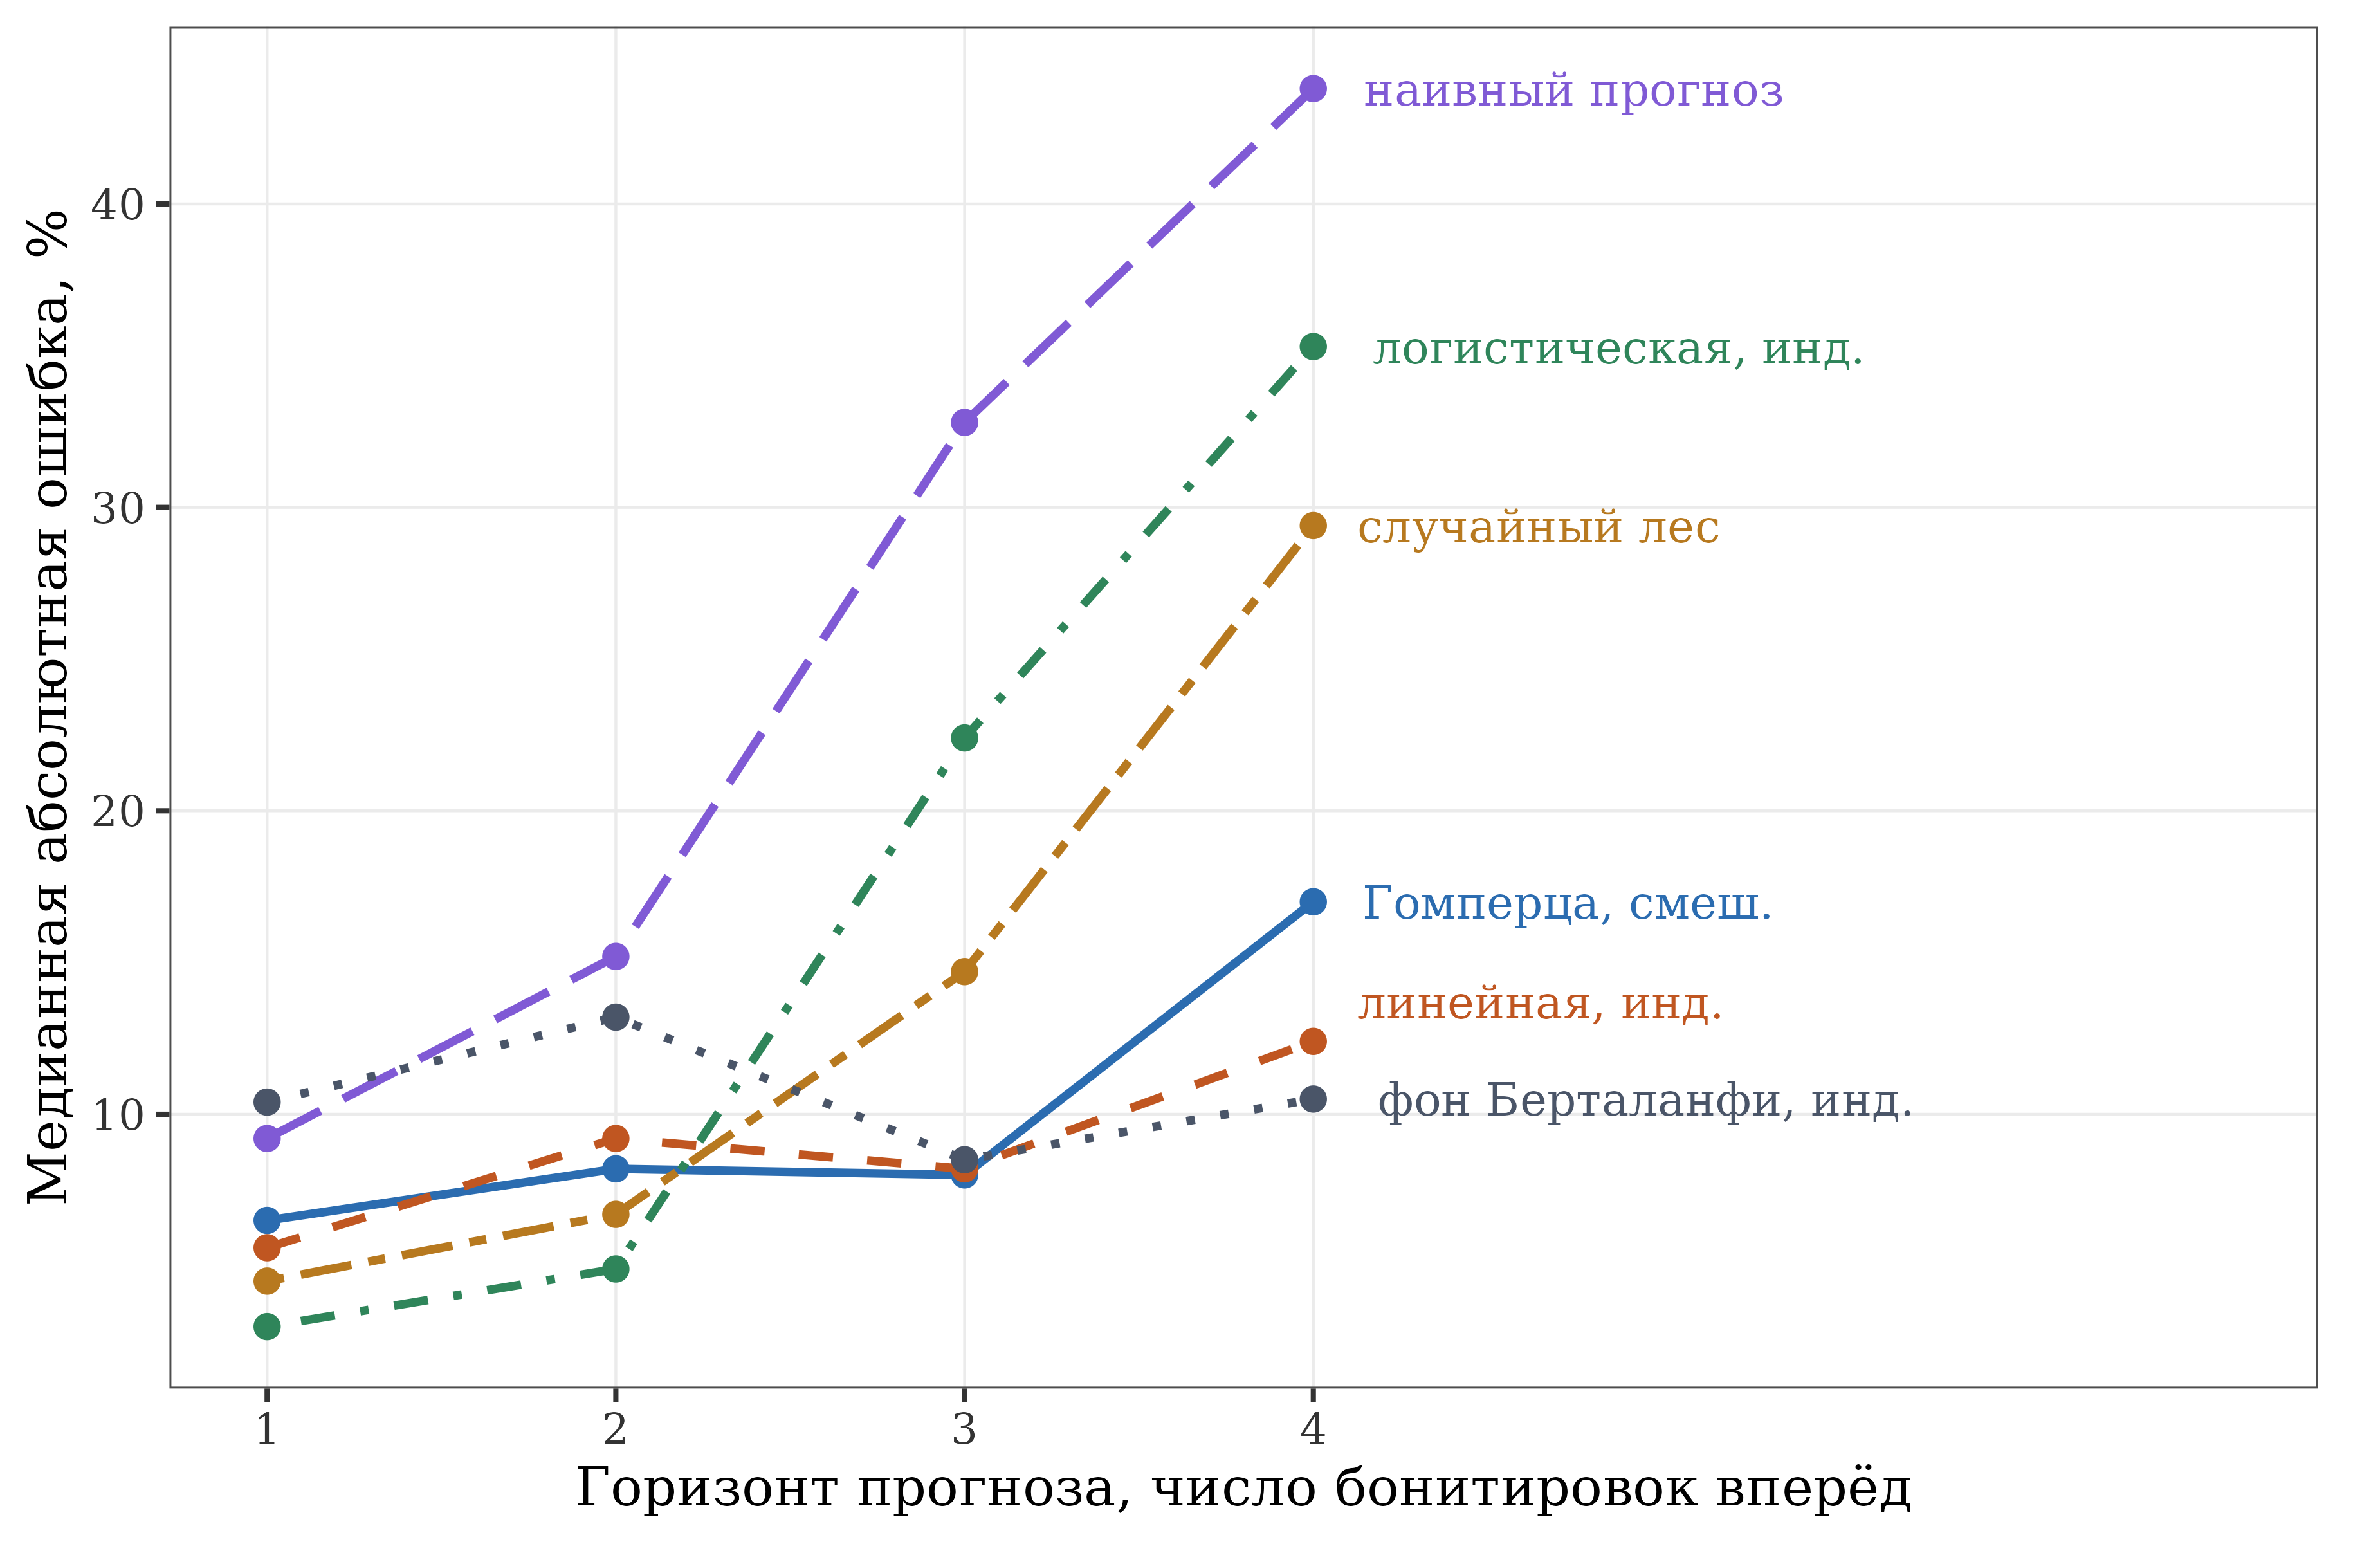
Рисунок 4 - Медианная абсолютная ошибка прогноза живой массы по горизонтам при обучении на первых восьми бонитировках
4. Обсуждение
Полученные результаты позволяют разграничить две задачи: описание наблюдаемого роста и прогнозирование живой массы. Для первой выбор конкретной нелинейной функции малосуществен — все рассмотренные модели описывают массив с сопоставимой точностью.
Основное методическое наблюдение состоит в том, что асимптотическая (максимальная теоретически достижимая) масса на имеющемся материале по сути не идентифицируема: имеющиеся данные не позволяют оценить ее надежно, поскольку разные модели, одинаково хорошо описывающие наблюдения, дают для нее существенно различающиеся значения. Точечная оценка W∞ по модели Гомперца (11101 г) практически совпадает с максимальной наблюдаемой массой (11110 г), а верхняя граница доверительного интервала (12441 г) лишь на 12% ее превышает, тогда как сибирский осетр в товарных условиях заведомо достигает существенно больших размеров. Следовательно, W∞ в данном случае — не биологическая константа, а статистический параметр, отражающий кривизну восходящего участка кривой на конкретном временном интервале. Полученный результат согласуется с рекомендациями современной методологии, которые призывают не ограничиваться априорным выбором одной модели роста, а сравнивать несколько альтернатив
. Кроме того, температурный режим эксперимента (21,1 °C) был ниже оптимума для массонакопления (около 26 °C), что также могло повлиять на форму кривой и сделать оценку W∞ еще более условной. Таким образом, интерпретировать асимптоту как предельную массу для вида или даже для данной популяции недопустимо без наблюдений, охватывающих фазу замедления роста .Неидентифицируемость асимптоты приводит к систематическим смещениям прогнозов криволинейных моделей, причем направление смещения зависит от участка траектории, использованного для обучения: на раннем этапе (экспоненциальный рост) модели резко завышают прогноз, на более позднем — занижают. Индивидуальная линейная аппроксимация, лишенная параметра насыщения, не дает столь выраженных провалов точности и сохраняет устойчивость на всех рассмотренных горизонтах. Однако этот факт не следует интерпретировать как свидетельство линейного характера роста сибирского осетра; скорее, он отражает артефакт, обусловленный высокой индивидуальной изменчивостью и ограниченным временным интервалом наблюдений, не охватывающим фазу замедления роста. Тем не менее с практической точки зрения линейная модель может оказаться предпочтительным инструментом для кратко- и среднесрочного производственного планирования, поскольку ее прогнозы характеризуются большей надежностью и меньшей чувствительностью к выбору функциональной формы зависимости, чем прогнозы нелинейных моделей с неидентифицируемыми параметрами.
Высокая индивидуальная изменчивость заслуживает отдельного внимания. Межиндивидуальное стандартное отклонение асимптотической массы превышает остаточное в 14,5 раза, а отрицательная корреляция случайных эффектов асимптоты и константы скорости (r = -0,87) указывает на градиент ростовых кривых — от быстрого выхода на меньшую массу до медленного роста к большей. Отрицательная корреляция между асимптотой и константой скорости роста свидетельствует о существовании альтернативных стратегий роста: одни особи быстро набирают массу, но достигают сравнительно низкого плато, другие растут медленнее, но потенциально способны к большему финальному размеру. Это создает основу для селекционной работы и объясняет, почему модели, учитывающие индивидуальную траекторию, превосходят популяционные, поскольку знание фактической массы конкретной особи дает больше информации для прогноза, чем знание средней динамики по группе.
Выявленное расхождение между самками и самцами по темпам роста согласуется с литературными данными о начале активного гаметогенеза у осетровых
. Отсутствие различий до 2 лет и последующее нарастание преимущества самок (до 20% по массе и 47% по приросту) имеют прямое практическое значение. После определения пола раздельное содержание становится экономически оправданным, так как позволяет синхронизировать сроки достижения товарной массы внутри каждой группы и избежать перерасхода кормов. При этом одинаковый аллометрический коэффициент у самцов и самок означает, что диморфизм проявляется именно в темпе массонакопления, а не в изменении пропорций тела, что делает обязательным прямое генетическое или ультразвуковое определение пола.Учет пола существенно повышает точность структурных моделей роста, но почти не влияет на модели, использующие текущее состояние особи. Таким образом, для краткосрочного прогноза при наличии данных индивидуальных взвешиваний, пол не является обязательным параметром. Однако при планировании по средним групповым показателям без учета пола ошибка может быть значительной. Таким образом, выбор стратегии прогнозирования должен определяться доступными данными: при наличии индивидуальных траекторий можно обойтись без пола, при работе с групповыми средними его учет обязателен.
Ранее выполненное нами исследование той же технологической группы
показало высокую точность оценки текущей живой массы по промерам и указало на перспективность методов машинного обучения. В настоящей работе мы перенесли задачу в плоскость прогноза и обнаружили, что преимущество ансамблевых методов (случайный лес) , реализуется лишь на коротких горизонтах (1–2 бонитировки). На более длинных горизонтах они уступают линейным моделям из-за принципиальной невозможности экстраполяции результатов за пределы обучающего диапазона. Это структурное ограничение следует учитывать при выборе инструментов для производственного планирования: машинное обучение эффективно для интерполяции и краткосрочных оценок, но не подходит для долгосрочного прогноза непрерывно изменяющихся процессов.Таким образом, выполненное исследование показывает, что выбор модели прогноза живой массы сибирского осетра в УЗВ должен определяться горизонтом планирования, наличием индивидуальных данных и учетом полового состава группы. Для краткосрочных прогнозов (до двух бонитировок) оптимальны индивидуальные нелинейные модели и случайный лес, для среднесрочных (три–четыре бонитировки) предпочтительнее линейные модели. Продолжение наблюдений до выхода на фазу замедления роста позволит уточнить параметры асимптоты и оценить применимость моделей с насыщением на более длительных интервалах.
5. Заключение
В результате трехлетнего эксперимента по выращиванию сибирского осетра (Acipenser baerii) в установке замкнутого водоснабжения установлено, что средняя живая масса рыб увеличилась с 345 до 7314 г при положительной аллометрии роста (b = 3,38), одинаковой для самцов и самок. Половой диморфизм проявляется с возраста 2,2 года и становится статистически значимым к 3,8 года, когда самки опережают самцов по массе на 19,9% (p = 0,004), а по абсолютному приросту за полтора года — на 47,4% (p <0,001).
Сравнительный анализ моделей роста показал, что все нелинейные функции (Гомперца, фон Берталанфи, логистическая, Ричардса) описывают эмпирические данные с сопоставимой точностью (R2 = 0,86-0,87), однако их экстраполяционные прогнозы расходятся на 36% к пятому году выращивания. Асимптотическая масса (W∞) на данном интервале наблюдений статистически не идентифицируема и не подлежит биологической интерпретации. Индивидуальная изменчивость параметров роста является основным источником вариабельности данных: межиндивидуальное стандартное отклонение W∞ (3226 г) в 14,5 раз превышает остаточное (222 г).
По точности прогноза лучшие модели обеспечивают медианную абсолютную ошибку 3,0–6,9% на одну бонитировку и 4,9–8,2% на две. Модели с насыщением демонстрируют систематическое смещение прогнозов, тогда как индивидуальная линейная аппроксимация устойчивее на всех горизонтах. Учет пола значимо повышает точность структурных моделей роста (на 22,6–24,8% на горизонте одной–двух бонитировок), но практически не влияет на модели, использующие текущую массу особи.
Практически значимым результатом работы является вывод о том, что выбор модели прогнозирования должен определяться горизонтом планирования и доступными данными:
1) для краткосрочных прогнозов (до двух бонитировок) предпочтительны индивидуальные нелинейные модели и случайный лес;
2) для среднесрочных (три–четыре бонитировки) — линейные модели.
Продолжение наблюдений до выхода на фазу замедления роста позволит уточнить параметры асимптоты и расширить горизонт применимости моделей с насыщением.